Réponse à Entracte Science et à son « débunkage » d’une vidéo créationniste
Je réagis à froid à une vidéo du paléontologue Julien Benoît sur sa chaîne YouTube Entracte Science qui cherche à débunker une vidéo créationniste anglophone.
Un créationniste du nom de Major Coleman, Dr en sciences politiques puis en sciences juridiques, est intervenu dans une émission américaine, animée par le speaker et auteur Anil Kanda. Major Coleman est enseignant et chercheur à la faculté de droit de St. Thomas University, il a expliqué pourquoi, selon lui, la théorie de l’évolution est erronée. Ce genre de background juridique aide en général à analyser les indices et les preuves afin d’atteindre une conclusion.
Cela a naturellement provoqué une réaction de l’évolutionniste Julien Benoît, connu dans la sphère francophone, pour critiquer vivement et âprement les arguments créationnistes.
Selon Julien Benoît, parmi les 4 idées majeures de l’évolution il y a la sélection naturelle et la descente avec modifications. Il s’avère que Coleman ne mentionnera aucune des deux.
Inscrivez vous sur QQLV!
Pour soutenir l’effort du ministère et la création de contenus:
Je suppute que Coleman est un créationniste sélectionniste, c’est à dire qu’il intègre la sélection naturelle et la descente avec modifications dans son propre modèle, c’est pourquoi il ne critique pas ses points. Son idée est sans doute que la sélection naturelle et les variations biologiques sont mineures et limitées, qu’elles ne sont pas extrapolâbles à l’infini.
Il est donc intéressant pour un créationniste non sélectionniste comme moi de noter ce point et probablement une faiblesse dans ce type de créationnisme que défend probablemen Coleman. Benoît a raison d’insister sur la sélection naturelle comme pierre angulaire de l’évolution. Si on en parle pas, il est difficile de critiquer l’évolution (de mon point de vue).
J’y reviendrai peut être plus bas mais il est cocasse de remarquer qu’il existe aussi des bien des créationnistes sélectionnistes que non sélectionnistes et aussi bien des évolutionnistes sélectionnistes que non sélectionnistes. En ce sens, il y a des points d’accords entre les sélectionnistes et les non sélectionnistes, même quand ils appartiennent à des camps différents.
Pour ma part, je suis davantage d’accord (sur certains points) avec les évolutionnistes non sélectionnistes qu’avec les créationnistes sélectionnistes. La réalité est toujours plus complexe que ce que l’on perçoit en surface ou de loin.
L’intervention de Coleman a énormément circulé sur les réseaux sociaux. Avec son ton fluide, éloquent et percutant on comprend pourquoi. Je ne reviendrai pas sur la forme de la réponse de Julien Benoît que chacun pourra juger par lui-même, ce qui importe c’est le fond.
Introduction
Julien Benoît déclare au début de sa vidéo:
« Si vous voulez debunker la théorie de l’évolution, ce qui est possible, faut 1.débunker la sélection naturelle, faut arriver à démontrer d’une manière ou d’une autre que, quand vous avez deux individus, un qu’est pété et pas l’autre, celui qu’est pété, va aussi bien survivre que l’autre, debunker la sélection naturelle c’est expliquer que celui qu’est pété et l’autre qui est en bonne santé, en réalité ils vont survivre pareil, et vous aurez debunker la sélection naturelle.«
Comme évoqué, il existe des évolutionnistes non sélectionnistes qui ont largement relégué cette notion de sélection naturelle aux oubliettes. Les évolutionnistes francophones sont souvent en retard par rapport à leurs collègues américains et anglais, c’est peut-être dû, au moins en partie, au fait que la communauté créationniste francophone est moins importante, moins affutée, la pression de la critique est donc moins élevée en France pour les évolutionnistes, en conséquence ils « n’évoluent » pas.
« Ou bien vous debunker la descendance avec modifications, en disant que ben mes enfants, c’est une reproduction exacte de moi, et vous aurez debunker la descendance avec modifications, et voilà c’est très simple en réalité.«
Les enfants ne peuvent pas être une reproduction exacte d’une personne, pour la simple et bonne raison qu’ils sont le produit de « deux » personnes, ils sont donc un mélange. Le fait qu’un enfant soit un mélange de ces parents ne milite pas en faveur d’un processus évolutif. Malgré les variantes au niveau des cheveux, des yeux, de la couleur de peau et d’autres points superficiels, les descendants humains restent des humains. Les chevaux restent des chevaux et les lapins des lapins.
Le cadre génétique est clair et contraint: tout n’est pas possible. Les mécanismes de réparation de l’ADN sont fiables (heureusement) et empêche qu’une théorie à la Richard Goldsmith, du monstre prometteur, soit possible (que dans un oeuf de reptile, un oiseau puisse sortir par exemple).
« C’est ça le problème quand on veut debunker des trucs comme la théorie de l’évolution, c’est d’une c’est que faut savoir que dans les 4 piliers dont il va nous parler, y a ces deux là et dans ces deux piliers, il faut réussir à débunker des savoirs aussi communs que « vos enfants vous ressemblent pas et des deux individus c’est celui qui est en meilleur santé qui fera le plus d’enfants, enfin qui survivra le mieux et du coup fera plus d’enfants », c’est que de bon sens la théorie de l’évolution«
Je crains de ne pas être d’accord sur les deux points.
Il paraît intuitif de penser qu’un animal en bonne santé se reproduira mieux qu’un individu de la même espèce qui est en mauvaise santé mais les choses ne sont pas aussi simples. Ca reste assez vrai de manière générale mais la reproduction dépend de nombreux facteurs comme l’âge, l’accès à un partenaire, les ressources, le comportement et l’environnement.
Chez l’humain, même si c’est pas forcément représentatif, une personne en excellente santé peut choisir de ne pas avoir d’enfant, tandis qu’une personne atteinte d’une maladie chronique peut en avoir plusieurs.
Une différence de santé ou de reproduction n’est pas forcément héréditaire. Si une blessure ou une maladie accidentelle réduit la reproduction d’un animal, cela peut modifier son nombre de descendants sans que la blessure soit transmise génétiquement.
Plus important encore, on a observé des situations où un problème de santé s’est accompagné temporairement d’un effort reproducteur accru.
Chez des reines fourmis une infection fongique peut déclencher un investissement accru dans la reproduction.1
Chez des grenouilles les chercheurs ont infecté expérimentalement deux espèces avec le champignon Batrachochytrium dendrobatidis, responsable d’une maladie grave chez les amphibiens.2 Ils ont observé plusieurs signes d’une activité reproductrice accrue: chez certains mâles, davantage de structures associées à la production de spermatozoïdes, chez des femelles, des ovaires et des oviductes plus développés.
Chez les drosophiles les chercheurs ont infecté expérimentalement des femelles drosophiles avec différentes bactéries pathogènes.3 L’effet moyen sur la fécondité dépendait de la bactérie utilisée. Parmi les femelles qui mouraient après l’infection, les réponses étaient variables: certaines se reproduisaient davantage que les témoins, d’autres moins.
Même si on part du principe qu’un individu en bonne santé se reproduira théoriquement davantage qu’un individu en moins bonne santé, cela ne nous explique pas l’origine des caractéristiques génétiques.
Les enfants ressemblent à leurs parents, il est faux de dire le contraire. Benoît, au vu de ses déclarations, doit ignorer que dans son propre camp, des évolutionnistes rejettent la sélection naturelle. Dans son livre The Altenberg 16, Susan Mazur relate:
« Elle [Lynn Margulis] ne voit la sélection naturelle ni comme la source de nouveauté héréditaire ni comme l’ensemble du processus évolutif et a prononcé la mort du néo-darwinisme, car il n’y a aucune preuve adéquate dans la littérature que des mutations aléatoires entraînent de nouvelles espèces.«
Lynn Margulis était docteure en génétique, professeure d’université, membre de la prestigieuse Académie nationale des sciences américaine et récipiendaire de la National Medal of Science. Elle est célèbre pour ses travaux sur l’endosymbiose dont Benoît parle indirectement dans sa vidéo.
L’Altenberg 16 désigne un groupe de 16 scientifiques et théoriciens de l’évolution qui s’étaient réunis en juillet 2008 à l’Institut Konrad Lorenz d’Altenberg, en Autriche. Leur objectif était de discuter de la nécessité d’une synthèse évolutive étendue afin de dépasser le cadre strict du néo-darwinisme traditionnel.
Susan Mazur, une journaliste d’investigation, a couvert l’évènement. Dans ce livre particulièrement intéressant on peut lire des choses comme:
“Une vague de scientifiques questionnent maintenant le rôle de la sélection naturelle, bien que peu l’admettrons publiquement.”
Denis Noble, physiologiste et biologiste britannique, professeur émérite à l’université d’Oxford, déclare dans la même veine:
« …. toutes les hypothèses centrales de la Synthèse moderne (souvent aussi appelée néo-darwinisme) ont été réfutées. De plus, elles l’ont été d’une manière qui ouvre la perspective fascinante d’une synthèse totalement nouvelle … »
Physiology is rocking the foundations of evolutionary biology, p.1235
Jerry Fodor, philosophe, spécialiste de la philosophie de l’esprit, de la psychologie cognitive et des sciences cognitives, fut professeur au MIT puis à l’université Rutgers, il a déclaré:
« Quelle est donc la morale de tout cela? D’abord, que le récit darwinien classique de l’évolution, centrée sur la sélection naturelle, est en difficulté sur les plans conceptuel et empirique. Darwin était trop “environnementaliste”. Il semble avoir été séduit par l’analogie avec la sélection artificielle, en imaginant que la sélection naturelle jouait le rôle de l’éleveur. Mais cette analogie est manifestement fausse: la sélection artificielle est réalisée par des êtres dotés d’un esprit, ce que la sélection naturelle n’a pas. »
tirée de sa célèbre critique Why Pigs Don’t Have Wings (2010). London Review of Books no. 20:19-22, p.20.
Il me serait possible de continuer à décliner ce genre de citation de la part d’évolutionnistes, oui je dis bien de la part d’évolutionnistes. Ces gens continuent de croire en l’ancêtre commun, tout en reléguant la sélection naturelle à un rôle mineur voire inexistant.
Il est assez simple de comprendre que ce filtre grossier ne peut pas expliquer la diversité du monde vivant. De nombreux traits ne sont pas vitaux chez les organismes, les avoir ou ne pas les avoir n’offre aucun avantage ou désavantage. Une pléthore d’organismes très variés occupe les mêmes environnements, il n’y a pas de formes privilégiées.
Enfin, l’origine des adaptations n’a rien à voir avec l’environnement (vision externaliste), elles s’expliquent en amont par la présence de variables à l’intérieur des organismes (vision internaliste). Quand on voit les organismes s’adapter aujourd’hui, on ne voit pas de phénomène d’extinction ou de reproduction différentielle, les organismes s’adaptent car ils sont programmés pour le faire.
Lynn Margulis déclarait par ailleurs:
« Les néo-darwiniens disent que de nouvelles espèces émergent lorsque des mutations se produisent et modifient un organisme. On m’a enseigné encore et encore que l’accumulation de mutations aléatoires menait au changement évolutif — menait à de nouvelles espèces. Je l’ai cru… jusqu’à ce que je cherche des preuves. »
Cité dans “Discover Interview: Lynn Margulis Says She’s Not Controversial, She’s Right,” Discover Magazine, p. 68 (April, 2011).
« La manière de penser de Darwin — selon laquelle toute sélection doit se produire sans but ni intention — passe apparemment sous silence, avec une certaine discrétion, la contradiction logique aveuglante de la “sélection sans intention” inhérente à sa pensée ! […] Il n’est guère surprenant que, dans une tentative récente de cerner précisément le statut phénoménologique de la “sélection naturelle”, David Brown ait conclu que ce terme est davantage une construction imaginative floue qu’un phénomène que l’on pourrait localiser dans le monde naturel lui-même. »
« Le terme manque d’un référent adéquatement défini, car un tel référent n’a jamais été localisé empiriquement dans la nature, ce qui fait de ce terme une sorte de fantôme sans existence matérielle. »
Neil Thomas. 2021. Natural Selection: A Conceptually Incoherent Term. Publié sur evolutionnews.org le 1er décembre 2021.
« Le truc, c’est : comment parler de la sélection naturelle sans impliquer la rigidité d’une loi? On l’utilise presque comme un participant actif, presque comme un dieu. En fait, on pourrait remplacer le mot “dieu” par “sélection naturelle” dans beaucoup d’écrits évolutionnistes, et on croirait entendre un théologien. C’est une routine dont on sait qu’elle n’existe pas, mais qu’on enseigne quand même: mutation génétique et une sorte de force active qui choisit la plus favorable. »
Greg Graffin, Darwin Was a Punk, Scientific American, 1er octobre 2010.
« Les biologistes évolutionnistes parlent couramment de la sélection naturelle comme s’il s’agissait d’un agent [et]… beaucoup d’entre eux assurent que l’idée d’un agent qui sélectionne n’est “qu’une métaphore” — tout en succombant eux-mêmes à la force persuasive de cette métaphore… Et nous devrions croire que la sélection naturelle, qui “n’est pas un agent, sauf métaphoriquement”, parvient à concevoir des artefacts ; et que l’organisme… n’est, au fond, ni créatif ni agent causal. »
« La capacité d’agir [de l’organisme] a été transférée à une abstraction [la sélection naturelle] dont l’agentivité ou la “force” causale est, dans une confusion intellectuelle, à la fois niée et constamment sous-entendue par les biologistes. La sélection naturelle devient alors une sorte de pouvoir occulte d’un âge préscientifique… »
Stephan L. Talbott, Can Darwinian Evolutionary Theory Be Taken Seriously?, 2016.
L’évolutionniste Robert Reid:
« …Robert Reid soutient que la sélection naturelle n’est pas la cause de l’évolution. Il affirme que les causes des variations, qu’il qualifie d’expériences naturelles, sont indépendantes de la sélection naturelle ; il suggère même que celle-ci pourrait entraver l’évolution. »
Biological Emergences – MIT press – https://mitpress.mit.edu/9780262513401/biological-emergences/
Ainsi, parmi les 4 piliers de Benoît, il s’avère que la sélection naturelle est effectivement remise en question (elle l’était déjà à l’époque de Darwin). Elle a toujours été. Voici la réponse de Pierre Flourens (1794 – 1867) secrétaire perpétuel de l’Académie des sciences française:
« Enfin l’ouvrage de M. Darwin a paru. On ne peut qu’être frappé du talent de l’auteur. Mais que d’idées obscures, que d’idées fausses! Quel jargon métaphysique jeté mal à propos dans l’histoire naturelle, qui tombe dans le galimatias dès qu’elle sort des idées claires, des idées justes! Quel langage prétentieux et vide! Quelles personnifications puériles et surannées! O lucidité! 0 solidité de l’esprit Français, que devenez-vous? »
réponse à L’Origine des espèces de Darwin par le secrétaire perpétuel de l’Académie des sciences française M. Pierre Flourens.
1.La vie qui proviendrait de la non-vie
Coleman présente l’argument selon lequel on a jamais observé la vie provenir de la non vie. Benoît répond:
« Ceci est une plante verte, cette plante verte transforme de la non vie en vie, à savoir de l’énergie solaire et de la matière organique non vivante, voilà, c’est bon, tout le monde est d’accord, mais on va me dire oui Julien tu joues sur les mots, c’est pas ça qui veut dire, mais si c’est exactement ça, on a jamais observé de la vie venant de la non vie, vous êtes fait de la même matière que tout le reste de l’univers et ça veut dire une chose toute simple, ça veut dire que la vie est un prolongement de la non vie. Si la vie avait quoique ce soit de spéciale, la vie ne serait pas faite de la même matière que tout le reste de l’univers, il n’y a rien de spécial dans le vivant, rien du tout, absolument rien.«
Il poursuit:
« On voit de la non vie devenir de la vie constamment, tout le temps, quand vous mangez des tomates, quand vous mangez de la salade, quand vous regardez votre plante verte, quand vous regardez un arbre. C’est de la vie qui provient très directement de la non vie. Et tout ça n’est que le prolongement d’un pattern beaucoup plus général et universel qui est que tout le domaine vivant est exactement de la même matière que le domaine du non vivant parce qu’il n’y a pas de limites franches entre les deux. Et pourquoi il n’y a pas de limites franches entre les deux parce que la vie vient de la non vie. La vie c’est juste de la réplication, une molécule, n’importe laquelle qui est capable de se répliquer est vivante«
Cette argumentation est étrange mais elle est au final assez révélatrice de la méthodologie de Benoît que j’avais découvert sur une autre thématique qui est l’origine des mammifères (et qui fera l’objet d’un article). Je vais essayer d’expliciter le manque de rigueur argumentative que j’observe chez lui (c’est mon avis mais peut-être que j’ai tort, soyez en juge).
Premièrement il y a souvent chez lui une confusion catégorielle où il traite comme équivalents deux phénomènes qui appartiennent à des catégories différentes. Il y a dans ses réponses beaucoup de raisonnement hors sujet où l’argument ne répond pas à la question fondamentale.
Deuxièmement il utilise des fausses analogies où il rapproche deux phénomènes qui présentent certaines similitudes mais diffèrent sur le point essentiel.
Troisièmement il utilise des arguments non pertinents (ignoratio elenchi). C’est un sophisme ou une erreur de raisonnement. C’est à dire qu’il peut présenter un argument valide en soi, mais dont la conclusion ne répond pas à la question ou au sujet débattu. L’argument passe à côté du problème principal.
On pourrait aussi parler d’argumentation par association d’idées où il relie des phénomènes par des ressemblances superficielles, sans établir de véritable lien démonstratif.
Je vais essayer de le démontrer dans ce premier sujet de l’abiogenèse. L’histoire évolutive doit montrer comment on est passé de matières inertes à une forme de vie quelconque, à une époque hypothétique où la vie n’existait pas sur terre (comme Mars aujourd’hui), c’est à dire qu’il n’y avait ni animaux, ni plantes, ni bactéries, ni champignons, ni levures ni quoi que ce soit.
Julien Benoît prend l’exemple d’une plante verte. Une plante transforme de la matière non vivante (eau, CO₂, sels minéraux) et utilise l’énergie solaire pour produire de la matière vivante. Selon lui, cela démontre que la vie peut émerger de la non-vie.
Le problème est qu’il confond deux phénomènes fondamentalement différents: le phénomène de la photosynthèse et de la croissance végétale VS l’abiogenèse.
Dans le premier phénomène on a déjà une cellule déjà vivante qui possède une organisation biochimique sophistiquée, elle utilise de l’énergie et des substances inorganiques pour synthétiser des molécules organiques et produire de la biomasse.
Pour information, l’ADN d’une plante verte, selon l’espèce, contient généralement des centaines de millions à plusieurs milliards de lettres génétiques dans son génome nucléaire (sur un brin du génome). Une plante verte est constituée de milliards de cellules (selon sa taille), chacune possédant une machinerie biologique extrêmement élaborée.
La liste des composants génétiques d’une plante verte et son fonctionnement complexe est hors de portée d’un article comme celui-ci, mais une plante verte dispose d’un noyau qui protège et organise l’ADN, des ribosomes qui sont de véritables usines moléculaires qui fabriquent les protéines, des protéines et des enzymes qui assurent des milliers de réactions chimiques indispensables à la vie, des mitochondries qui produisent l’essentiel de l’ATP issu de la respiration cellulaire, c’est à dire une source d’énergie directement utilisable.
On peut parler aussi de la membrane cellulaire qui contrôle les échanges de susbtances avec l’environnement, la paroi cellulaire qui est composée principalement de cellulose qui assure la rigidité et la protection. La place manque pour parler des vacuoles (qui stocke l’eau et diverses substances pour maintenir la pression interne de la cellule), des systèmes de transport (de l’eau, des minéraux, des sucres…), des systèmes régulation et de signalisation (où hormones végétales et réseaux moléculaires coordonnent croissance, développement et réactions à l’environnement) ou encore des systèmes de reproduction qui assurent la formation et la transmission du patrimoine génétique aux générations suivantes.
Lorsqu’une plante transforme de la matière non vivante en biomasse, elle mobilise son ADN, ses enzymes, ses membranes, ses systèmes énergétiques et ses mécanismes de régulation.
La question de l’abiogenèse (de la vie provenant de la non vie) est précisément de comprendre comment les premiers systèmes vivants ont pu apparaître avant l’existence d’une telle machinerie biologique.
En revenant aux deux phénomènes évoqués, Julien Benoît évoque la photosynthèse (processus éminament complexe) et la croissance végétale alors que Major Coleman parle d’abiogenèse où il s’agit expliquer comment des systèmes chimiques initialement non vivants ont pu donner naissance à un premier système vivant, capable notamment de maintenir son organisation, de se reproduire et de transmettre de l’information héréditaire.
La différence est capitale car dans le premier cas, la machinerie biologique existe déjà ; dans le second, il faut précisément expliquer son apparition. Benoît utilise le point final (une plante verte qui dispose de centaines de millions de lettres dans son ADN) pour expliquer le point de départ (l’apparition de la vie il y a des milliards d’années quand aucun génome n’existait alors pour mobiliser les ressouces solaires ou de l’environnement).
L’exemple de la plante démontre qu’un organisme vivant peut utiliser de la matière non vivante pour se développer. Il ne démontre pas qu’un organisme vivant peut apparaître spontanément à partir de matière non vivante.
Il s’agit donc d’un glissement entre la production de matière vivante par un système déjà vivant et l’apparition initiale d’un système vivant.
Benoît parle également du fait que nous sommes fait de la même matière que tout le reste de l’univers et selon lui ça veut dire une chose toute simple, ça veut dire que la vie est un prolongement de la non vie. Il dit encore si la vie avait quoique ce soit de spéciale, la vie ne serait pas faite de la même matière que tout le reste de l’univers. Je n’ai pas compris pourquoi si la vie était spéciale elle ne devrait pas être faite de la même matière que tout le reste de l’univers. Je ne comprends pas d’où viennent ces règles du jeu, pas de la Bible en tout cas:
L’Éternel Dieu forma l’homme de la poussière de la terre, il souffla dans ses narines un souffle de vie et l’homme devint un être vivant.
Genèse 2:7
Benoît dit encore il n’y a rien de spécial dans le vivant, rien du tout, absolument rien pourtant la terre semble bien spéciale, elle est la seule à contenir la vie telle qu’on la connait, Mars, bien que baignée également par le soleil ne produit aucune vie. La vie est spéciale, pourquoi? Définissons tout d’abord ce qu’on entend par « spécial ».
Quelque chose de spécial c’est quelque chose d’extraordinaire ou d’exceptionnel. C’est peu commun, c’est singulier, bref c’est très particulier ou rare, ça sort du cadre ordinaire.
Jusqu’à présent, nous ne disposons d’aucune confirmation scientifique d’une vie extraterrestre (la prédiction implicite de la Bible est qu’il n’y en a pas). Cela signifie que la Terre est le seul endroit où l’existence de la vie est actuellement établie.
Voici quelques caractéristiques remarquables de la vie terrestre:
| Caractéristique | Particularité du vivant |
|---|---|
| Information génétique | L’ADN conserve une information héréditaire permettant notamment la fabrication de protéines. |
| Machinerie moléculaire | Des protéines et des complexes moléculaires réalisent des opérations coordonnées. |
| Métabolisme | Les organismes captent et transforment de l’énergie et de la matière pour se maintenir. |
| Autorégulation | Ils maintiennent leur organisation interne malgré les variations de l’environnement. |
| Reproduction | Ils peuvent produire de nouveaux organismes transmettant une information héréditaire. |
| Autoréparation | Ils possèdent des mécanismes de réparation et de renouvellement. |
| Adaptation | Les populations vivantes peuvent s’adapter à divers environnements. |
| Conscience | Certains organismes, notamment les humains, possèdent des capacités de perception subjective, de réflexion et de raisonnement. |
Ce qui rend le vivant particulièrement remarquable, c’est intégration de toutes ses particularités dans un système matériel organisé, capable de se maintenir et de perpétuer son organisation. On peut y ajouter la beauté, l’art, l’altruisme, les émotions, bref plein de choses qui sont uniques sur terre et qui n’existent pas ailleurs.
Même d’un point de vue non religieux, purement pragmatique, la vie est spéciale, la terre est spéciale, le système solaire est spécial. Ce n’est pas un raisonnement biaisé mais une observation objective des faits, à moins que l’on ne démontre la banalité de la vie dans l’univers et la banalité des conditions offertes dans le système solaire.
L’évolutionnisme conduit à chercher des défauts ou des mauvais designs, à dénigrer le merveilleux et à ne pas concevoir que la terre est spéciale, tout comme la vie qu’elle contient.
Major Coleman a raison sur son premier argument: on a pas de preuves que la vie provient du non vivant. Louis Pasteur l’avait déjà démontré en son temps:
«Jamais la doctrine de la génération spontanée ne se remettra du coup mortel de cette simple expérience. Il n’y a aucune circonstance connue dans laquelle il peut être confirmé que les êtres microscopiques sont venus au monde sans germes, sans parents semblables à eux»
René Vallery-Radot, La vie de Pasteur, 1901, pp.142.
La génération spontanée et l’abiogenèse sont la même chose, j’aborde ces choses en détail dans l’article suivant:
Dernièrement, Benoît indique que les créationnistes croient aussi que la vie provient de la non vie, mais ce n’est pas vrai:
C’est toi, Éternel, toi seul, qui as fait les cieux, les cieux des cieux et toute leur armée, la terre et tout ce qui est sur elle, les mers et tout ce qu’elles renferment. Tu donnes la vie à toutes ces choses, et l’armée des cieux se prosterne devant toi.
Néhémie 9:6
Car, comme le Père a la vie en lui-même, ainsi il a donné au Fils d’avoir la vie en lui-même.
Jean 5:26
Jésus lui dit : Je suis le chemin, la vérité, et la vie. Nul ne vient au Père que par moi.
Jean 14:6
2.Toutes les formes de vie proviennent d’une vie monocellulaire
Major Coleman poursuit sur le deuxième pilier qui serait que selon l’évolution, toutes les formes de vie actuelles proviennent originellement d’une vie unicellulaire. Benoît répond:
« Il va nier que toutes les formes de vie viennent d’une seule et unique cellule, donc les formes de vie que nous voyons aujourd’hui ne peuvent pas venir de quelque chose à une seule cellule, visiblement Monsieur n’est pas très familier avec le système du développement des embryons puisqu’absolument toutes les formes de vie multicellulaire aujourd’hui commencent par une seule cellule: un ovule fécondé… mais visiblement il a pas l’air d’être au courant.
Encore une fois vous allez me dire qu’on joue sur les mots, vous avez l’affirmation sèche que beaucoup de créationnistes font, que la vie complexe ne peut pas venir d’une seule cellule, ben si, c’est ce que vous faites, 9 mois avant votre naissance vous étiez une seule et unique cellule. Si ce que votre mère a accompli sans réfléchir en 9 mois, pourquoi 4 milliars d’années d’évolution n’y arriverait pas, d’où sort l’affirmation que ça ne peut pas se produire en 4 milliards d’années. Ca ne sort de nulle part, même pas d’un raisonnement logique quelconque.«
On a ici encore un bel d’exemple d’un raisonnement hors sujet ou d’une confusion catégorielle ou encore d’un argument non pertinent.
Benoît fait une confusion entre deux phénomènes biologiques distincts: l’ontogenèse (développement individuel) et la phylogenèse (histoire évolutive des lignées).
L’argument consiste à invoquer un phénomène bien réel qui est le développement d’un organisme multicellulaire à partir d’une seule cellule pour soutenir la possibilité d’un phénomène très différent qui est l’apparition évolutive des organismes multicellulaires à partir d’ancêtres unicellulaires.
L’analogie de la mère et du développement embryonnaire est trompeuse, l’analogie confond la mise en œuvre d’un système et l’origine de ce système, elle transpose abusivement un phénomène individuel à l’histoire des lignées. Les neuf mois de développement d’un être humain ne constituent pas une version accélérée de milliards d’années d’évolution.
L’argument de Benoît illustre une confusion classique entre ontogenèse et phylogenèse. Que le corps humain se développe à partir d’une cellule unique est un fait biologique incontestable. Mais cette cellule possède déjà l’information génétique, la machinerie moléculaire et les systèmes de régulation indispensables au développement embryonnaire.
La question de l’évolution de la multicellularité porte précisément sur l’origine historique de ces capacités biologiques. On ne démontre pas l’apparition évolutive d’un système en montrant simplement que ce système, une fois constitué, est capable de fonctionner.
Expliquer comment une machinerie biologique fonctionne n’est pas expliquer comment cette machinerie est apparue en premier lieu.
Coleman poursuit en affirmant qu’il n’y a pas de formes de vie à deux, trois ou quatre cellules. Benoît répond:
« N’a t’on pas de formes de vie à deux cellules? Attendez je vais demander à ma mitochondrie, ah non je peux pas, elle est à l’intérieur d’une autre, oh merde, oh zut alors, Monsieur n’est pas au courant que les mitochondries sont des cellules bactériennes à l’intérieur d’une cellule eukaryotique donc toutes formes de vie unicellulaire mais qui contient en fait une mitochondrie est en fait un organisme composé de deux cellules.«
Coleman n’a pas tout à fait raison avec son argument généraliste. Du moins il faut préciser le sujet, c’est ce que je vais essayer de faire.
Toutefois l’exemple de Benoît avec les mitochondries est révélateur une fois de plus d’une confusion catégorielle, parce que Benoît semble assimiler les organites d’une cellule (comme les mitochondries) à des cellules distinctes constituant un organisme multicellulaire. Or, cette assimilation est scientifiquement incorrecte dans la terminologie biologique.
L’affirmation que « toutes formes de vie unicellulaire mais qui contient en fait une mitochondrie est en fait un organisme composé de deux cellules. » est une erreur.
Une mitochondrie est un organite intracellulaire (un compartiment spécialisé) et non une cellule indépendante. Elle possède certaines caractéristiques remarquables avec un ADN propre, des ribosomes, une double membrane et la capacité de se diviser. Mais elle dépend très largement des protéines produites à partir des gènes du noyau de la cellule hôte. La littérature scientifique distingue clairement ces deux catégories.
La définition de la multicellularité repose sur la présence de plusieurs cellules constitutives, et non sur le nombre d’organites présents à l’intérieur d’une cellule.4
Je vais m’essayer à une analogie moi aussi afin d’aider chacun à comprendre. Une cellule est comparable à une usine complète tandis que ses organites (mitochondries, chloroplastes, etc.) sont comparables aux machines spécialisées qui fonctionnent à l’intérieur de cette usine.
Une usine contenant dix machines ne devient pas dix usines! De même, une cellule contenant dix mitochondries reste une seule cellule et non un organisme composé de onze cellules.
Benoît poursuit:
« On a pas d’organismes à 3 cellules… chloroplaste, je joue la carte chloroplaste, vous avez une cellule eukaryote avec une mitochondrie à l’intérieur, donc une protéobactérie si je ne m’abuse et vous rajoutez une cyanobactérie qui vous donne donc un chloroplaste à l’intérieur, et ça vous donne n’importe quel protozoaire capable de photosynthèse, les algues rouges, les algues brunes étant des exemples.«
Julien Benoît fait la même erreur que sur les mitochondries avec les chloroplastes. Une cellule végétale qui possède une mitochondrie et un chloroplaste n’est pas un organisme constitué de trois cellules.
Une cellule végétale contenant des mitochondries et des chloroplastes reste une seule cellule.
D’ailleurs, une cellule végétale peut contenir de nombreuses mitochondries et de nombreux chloroplastes. Si l’on adoptait son raisonnement, on devrait arbitrairement qualifier cette cellule d’organisme composé de dizaines de cellules.
L’endosymbiose n’est pas la multicellularité, c’est une distinction décisive.
Dans l’endosymbiose une cellule vit à l’intérieur d’une autre ce qui évolutionnairement peut aboutir à l’intégration d’un organisme en organite.
La multicellularité implique plusieurs cellules qui constituent un organisme collectif. Cela aboutit à la différenciation et à la coopération de cellules.
Les deux phénomènes ne sont pas interchangeables et je parle là d’un point de vue évolutif car les créationnistes ne croient pas en la théorie de l’endosymbiose. Une publication scientifique évolutionniste intitulée Major evolutionary transitions of life, metabolic scaling and the number and size of mitochondria and chloroplasts (2016) les traite précisément comme deux transitions distinctes: d’un côté l’acquisition endosymbiotique des organites et de l’autre le développement de la multicellularité.
Il y a une confusion catégorielle où il assimile un organite à une cellule constitutive d’un organisme multicellulaire. Il exploite deux sens différents du mot « cellule »: une cellule bactérienne ancestrale et un organite moderne issu, selon la théorie endosymbiotique, de cette cellule.
C’est un argument non pertinent (ignoratio elenchi) car si la question initiale porte sur l’existence d’organismes composés de deux ou trois cellules, la présence de mitochondries et de chloroplastes ne fournit pas les exemples recherchés.
Voilà une nouvelle confusion catégorielle. Une mitochondrie n’est pas une cellule indépendante, mais un organite intégré à une cellule eucaryote. Il en va de même pour le chloroplaste.
Que ces organites soient considérés comme les descendants de bactéries ancestrales dans le cadre de la théorie endosymbiotique ne change rien à leur statut biologique actuel.
Une cellule eucaryote contenant des mitochondries et des chloroplastes reste une seule cellule, et non un organisme composé de deux ou trois cellules.
L’endosymbiose et la multicellularité sont deux phénomènes biologiques distincts. Invoquer le premier pour fournir des exemples du second constitue une confusion conceptuelle et clairement pas une réponse au soulevé par Coleman, qui je vais y revenir n’est pas correct non plus.
La théorie de l’endosymbiose
Disons un mot un instant avant de poursuivre sur la théorie de l’endosymbiose elle-même, indépendamment des arguments de Benoît.
Le fait que l’ADN mitochondrial ressemble à celui de certaines bactéries n’implique pas nécessairement qu’il en est issu. Cela peut être interprété comme un exemple de design optimisé réutilisé dans différents contextes biologiques.
Il n’existe aucune observation expérimentale où on a transformer une bactérie en véritable mitochondrie ou chloroplaste. L’hypothèse repose sur des inférences rétrospectives et non des faits observés.
L’intégration stable d’un génome étranger, la coordination entre l’ADN mitochondrial et nucléaire, et le transport précis des protéines impliquent une orchestration complexe difficilement explicable par étapes évolutives.
Du point de vue créationniste, les mitochondries font partie intégrante du design eucaryote dès l’origine. Leur apparente autonomie est fonctionnelle et non vestigiale.
- Les prokaryotes sont des cellules simples sans organites compartimentés.
- Les eucaryotes, au contraire, présentent une organisation complexe, avec un noyau et des organites (mitochondries, réticulum, Golgi, etc.).
L’évolution postule que les eucaryotes dérivent des prokaryotes mais aucune forme transitionnelle entre ces deux grands types cellulaires n’a été découverte. C’est considéré comme une des plus grandes « discontinuités évolutives »5
- Les ribosomes mitochondriaux (mitoribosomes) sont très différents des ribosomes bactériens (70S).
- Leur taille (55S), leur composition en protéines, leur structure, leurs ARN et leurs interactions fonctionnelles sont profondément divergentes.
- Environ 33 des 81 protéines des mitoribosomes humains n’ont aucun équivalent chez les bactéries.67
La similitude supposée entre ribosomes bactériens et mitochondriaux, qui était un pilier de la théorie endosymbiotique, s’effondre face à ces différences structurelles et génétiques.
Les archées (prokaryotes avancés) ne pratiquent pas la phagocytose. Or, la théorie endosymbiotique repose sur l’englobement d’un α-protéobactérie mais phagocyter requiert:
- une paroi cellulaire flexible,
- un cytosquelette dynamique,
- un système endomembranaire,
- des lysosomes…
Aucun de ces éléments n’existe chez les prokaryotes.
Le mécanisme initial de l’absorption de la bactérie n’est ni observé, ni plausible, ce qui laisse un vide explicatif majeur.
Bien que souvent comparée à une bactérie, la mitochondrie possède:
- une double membrane très spécialisée (et différente de celle des bactéries),
- des enzymes ancrés dans des plis appelés crêtes,
- un métabolisme énergétique avancé, avec des voies complexes (cycle de Krebs, phosphorylation oxydative),
- des fonctions de régulation calcique, lipidique, etc.
Elle produit 90% de l’énergie cellulaire chez l’humain. Elle est bien plus qu’un « reste de bactérie intégrée ».
- Seuls 10 à 20% des protéines mitochondriales ont des homologues clairs avec les α-protéobactéries.
- Le reste semble spécifique aux eucaryotes.
- Malgré des décennies de recherche, les scientifiques reconnaissent que l’origine des mitochondries reste un mystère avec de nombreuses hypothèses concurrentes.
La mitochondrie ne peut pas être simplement une ancienne bactérie apprivoisée. Les différences moléculaires, structurelles et fonctionnelles sont profondes, et l’hypothèse de l’endosymbiose repose sur des mécanismes non observés et non testables.
En tant que créationniste nous pensons simplement à une création spécifique de la mitochondrie, pas besoin d’expliquer toute cette complexité par la simple fusion d’une cellule primitive avec une bactérie.
L’irréductible complexité (ex : piège à souris de Behe) s’applique:
- aux ribosomes,
- aux systèmes de transport intracellulaire (transport vésiculaire, transport par pores),
- à l’ensemble des mécanismes de reconnaissance, codage, signalisation.
Ces systèmes doivent être complets pour fonctionner, donc pas évolutifs par étapes.
L’organisme 4, 5 cellules…
Revenons à la réponse de Benoît à propos des organismes à nombre de cellules intermédiaires entre organismes unicellulaire et multicellulaires et aux affirmations inexactes de Coleman. Benoît dit:
« Est-ce qu’on connaît des organismes à cellules? Monsieur n’est pas familier avec la notion de choanoflagellé. Les choanoflagellés forment des colonies qui vont de 4 à 50 cellules. Voilà, les choanoflagellés se sont des petits êtres unicellulaires qui s’assemblent en colonies de 4 à 50 cellules. Des colonies à 4 cellules on en a.«
Cette fois-ci il y a du vrai dans ce que dit Julien Benoît au sujet des choanoflagellés, il faut savoir reconnaître quand c’est correct sinon c’est du dogmatisme ou de l’idéologie. Il y a toutefois quelques explications à donner pour distinguer la partie opérationnelle, du scénario évolutif qui en est tiré.
Les choanoflagellés occupent une position particulière dans les classifications évolutionnistes car ils sont considérés comme le groupe frère des animaux, c’est-à-dire leurs plus proches parents unicellulaires actuels connus. Certaines espèces, comme Salpingoeca rosetta, alternent entre une existence unicellulaire et une forme coloniale composée de plusieurs cellules.
Toutefois les choanoflagellés ne sont pas considérés comme l’ancêtre des animaux, ni une étape par laquelle ils seraient passés. C’est dans un sens descriptif qu’ils occupent une position intermédiaire dans le scénario évolutif. Ce sont des organismes fondamentalement unicellulaires, cependant certaines espèces forment des colonies clonales qui présentent quelques caractéristiques de la pluricellularité (adhésion, coordination), sans en avoir d’autres (spécialisation des cellules, dépendance mutuelle, cellules reproductrices dédiées).
Notons que les choanoflagellés sont des eukaryotes et non des procaryotes comme les bactéries, or il existe un véritable fossé entre les deux (et donc entre bactérie et choanoflagellé).8 On ne connaît aucun intermédiaire entre ces grands groupes, ni dans la nature ni dans les archives fossiles.
De plus, les évolutionnistes ne croient pas que les éponges (qui possèdent des choanocytes, cellules semblables à celles des choanoflagellés) aient évolué en un autre type d’animal.9
Voici quelques différences saillantes entre procaryotes et eucaryotes:
| Procaryotes | Eucaryotes | |
|---|---|---|
| Noyau | Absent (ADN dans le cytoplasme, zone appelée nucléoïde) | Présent, entouré d’une membrane |
| Organites membranaires | Absents | Présents (mitochondries, réticulum, Golgi, chloroplastes chez les plantes…) |
| Taille | Petite (environ 1 à 10 µm) | Plus grande (environ 10 à 100 µm) |
| ADN | Généralement un chromosome circulaire, plus des plasmides | Plusieurs chromosomes linéaires associés à des histones |
| Division | Scissiparité | Mitose et méiose |
| Cytosquelette | Simple | Développé (actine, microtubules) |
| Organisation | Toujours unicellulaires (parfois en colonies ou filaments) | Unicellulaires ou pluricellulaires |
| Exemples | Bactéries, archées | Animaux, plantes, champignons, protistes (dont les choanoflagellés) |
Le choanoflagellé est-il un organisme à plusieurs cellules? On peut le dire, à condition de préciser de quel type de pluricellularité il s’agit. C’est pourquoi beaucoup de chercheurs utilisent des formules comme « unicellulaire capable de former des colonies » ou « pluricellularité facultative » plutôt qu’un simple « unicellulaire » ou « pluricellulaire ».
Il y a plusieurs raisons qui font qu’on les classe d’abord comme unicellulaires.
La cellule reste l’unité de base de leur vie.
- Chez un animal, la forme pluricellulaire est obligatoire, il ne peut pas vivre comme une cellule isolée, le stade unicellulaire (l’œuf) est très bref.
- Chez les choanoflagellés, c’est l’inverse, c’est à dire que la cellule isolée est un individu complet et viable, et la colonie est une option, qui dépend des conditions.
Toutes les espèces de choanoflagellés ne forment pas de colonies. Nombre d’entre eux vivent uniquement sous forme de cellules isolées.
Avoir plusieurs cellules ne suffit pas pour être qualifié de pluricellulaire.
La multicellularité est un état biologique qui caractérise les organismes composés de plusieurs cellules proches spatialement, qui interagissent entre elles et sont généralement différenciées en différents types cellulaires.
Il y a une spécialisation cellulaire. Cela veut dire que les cellules ne sont pas toutes identiques ; elles se différencient (neurones, cellules musculaires, cellules végétales, etc.) pour accomplir des tâches précises (digestion, locomotion, vision)
Les cellules fonctionnent de manière synchronisée au sein de l’organisme.
En biologie, la pluricellularité sous-entend en général que les cellules dépendent les unes des autres et se répartissent les tâches. Sinon, il faudrait aussi qualifier de pluricellulaires des bactéries qui forment des amas, ou des levures qui restent collées après division.
Les cellules d’une colonie de choanoflagellés restent semblables et autonomes, ce qui les rapproche davantage d’un groupe d’individus coopérant que d’un organisme intégré. Ces colonies ne sont pas comparables à un animal doté de tissus spécialisés et d’une coordination physiologique complexe.
Chez un animal multicellulaire complexe, on trouve une véritable division du travail:
- Cellules nerveuses: transmission des signaux.
- Cellules musculaires: contraction et mouvement.
- Cellules épithéliales: protection et échanges.
- Cellules reproductrices: reproduction.
Chez les choanoflagellés coloniaux, notamment Salpingoeca rosetta, les cellules se ressemblent beaucoup et assurent globalement les mêmes fonctions, même si elles ne sont pas strictement identiques.
Le terme de colonie est assez juste en réalité, il désigne un ensemble de cellules unicellulaires apparentées qui coopèrent, mais qui restent chacune un individu potentiellement autonome. On est à l’inverse de la multicellularité animale où les cellules ne sont pas autonomes.
Il y a donc une nette différence entre une colonie de cellules principalement semblables et relativement autonomes et un organisme dont les cellules sont fortement différenciées et interdépendantes.
La multicellularité des choanoflagellés est loin de ressembler à la multicellularité des animaux.
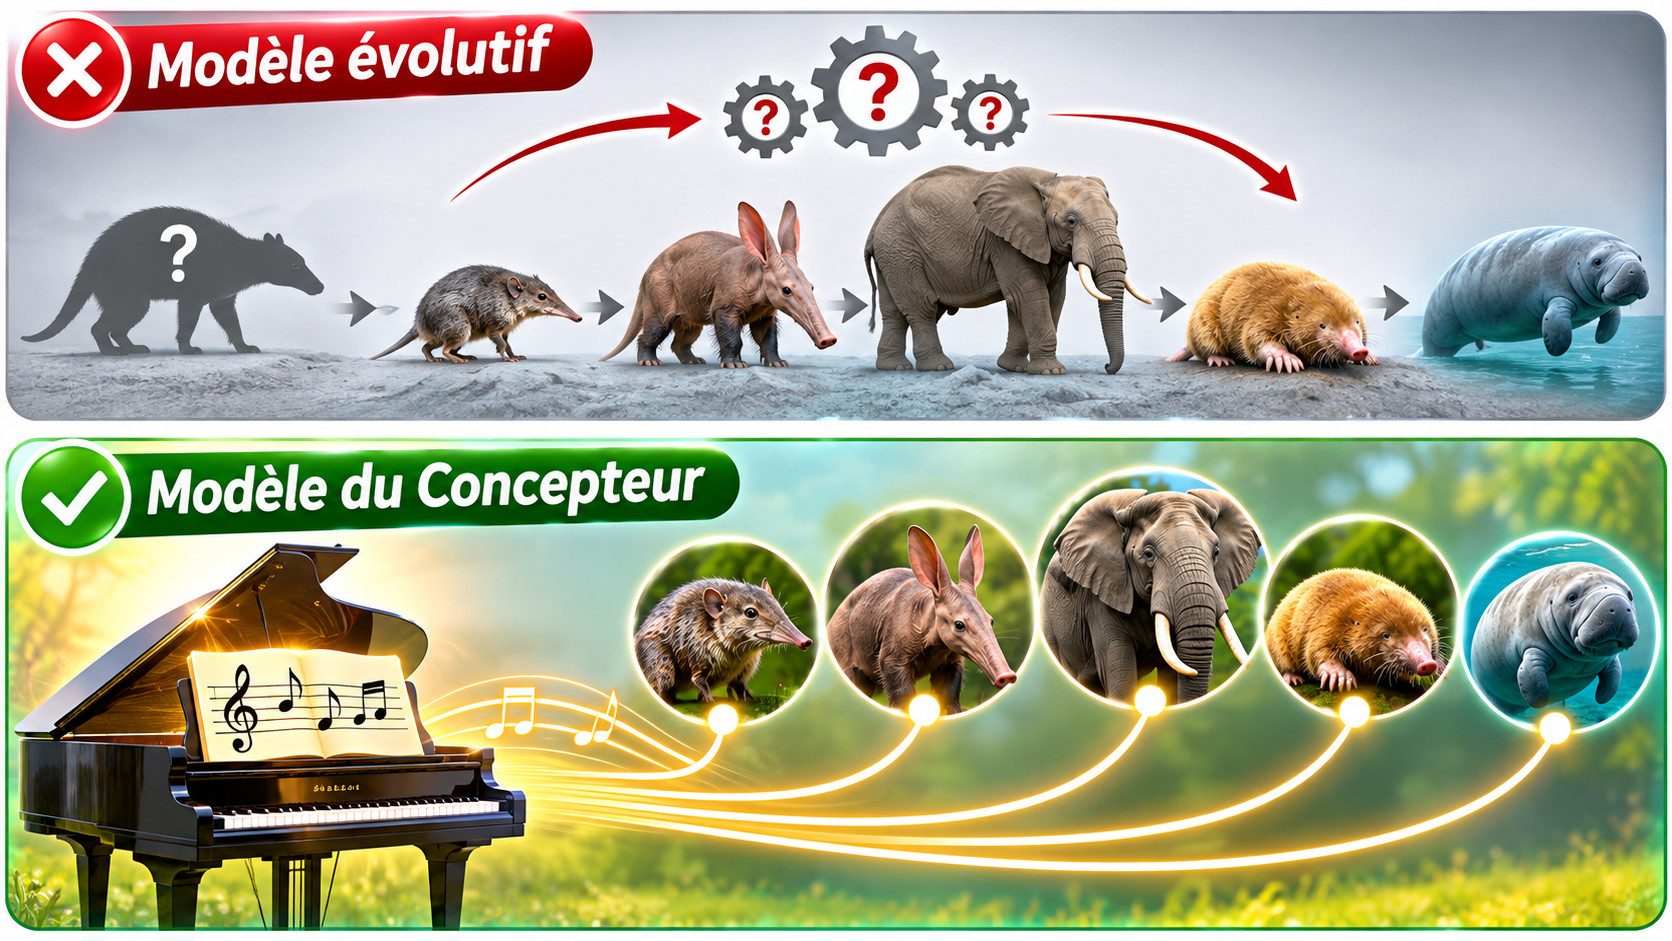
Du point de vue créationniste, l’histoire évolutive du passage de la monocellularité à la pluricellularité est superflue et non nécessaire. Il y a une autre manière de voir les choses avec le concepteur en commun et des créations séparées, ce qui est clairement appuyé par les discontinuités, non seulement entre les divers groupes d’animaux mais aussi entre procaryotes et eucaryotes.
3.L’évolution ça fonctionne avec le temps et le hasard
Major Coleman poursuit en affirmant que l’évolution est censée fonctionner avec le temps et le hasard. Il indique que le temps est l’ennemi de l’évolution en réalité (il pense peut être à l’entropie génétique à ce moment là) et que le hasard ne peut pas assembler une protéine de 100 unités. Benoît répond:
« L’évolution ça fonctionne sur beaucoup de temps, ça je suis d’accord, mais ça fonctionne aussi sur du hasard et ça c’est faux, c’est non seulement faux mais c’est en contradiction principale avec l’un des piliers dont je vous ai parlé tout à l’heure, y en a un c’est la sélection naturelle et l’autre c’est la descendance avec modification, l’évolution c’est du hasard, ben non c’est en contraction avec la règle numéro 1 qui est la sélection naturelle, la sélection, sélection, c’est tout le contraire du hasard, c’est l’opposé du hasard par définition, la sélection naturelle fera que c’est celui en bonne santé qui survivra le mieux et aura le plus de descendance. Si c’était du hasard, alors ce serait 50/50. Mais en l’occurence la sélection naturelle fait en sorte que ce sera pas 50/50. Encore une fois ça demande pas d’être professeur, ça demande juste d’avoir un niveau de base de refléxion de 2 secondes et un truc que je le soupçonne de pas avoir, de l’honnêteté intellectuelle.«
Ici Benoît semble à nouveau confondre deux choses: la sélection naturelle et les mutations qui elles sont aléatoires. Lisons quelques citations d’évolutionnistes avant de poursuivre:
« La mutation est un processus aléatoire par rapport aux besoins adaptatifs de l’espèce. »
Dobzhansky, Genetics of the Evolutionary Process, 1970, p. 65, cité par la Stanford Encyclopedia of Philosophy. (emphase ajoutée)
« Les variations héréditaires résultent de mutations individuellement peu fréquentes ; elles sont aléatoires en ce sens que leurs effets phénotypiques éventuels ne sont pas dirigés vers un “besoin”. »
Douglas Futuyma, Evolutionary Biology Today and the Call for an Extended Synthesis, 2017, passage reprenant sa présentation de la synthèse moderne. (emphase ajoutée)
« Les mutations qui produisent les variations héréditaires disponibles pour la sélection naturelle apparaissent aléatoirement. »
In the Light of Evolution: Volume I — Adaptation and Complex Design, National Academies Press, 2007. (emphase ajoutée)
Quand un créationniste critique la nature aléatoire de l’évolution, il critique la notion de « mutations aléatoires », le mot « hasardeux » est un synonyme du mot « aléatoire. En contraste, avec la vision internaliste et finaliste qui prévalait avant Darwin et encore aujourd’hui dans les rangs créationnistes ou de la communauté du dessein intelligent, la vision darwinienne, externaliste, n’est pas finaliste ou téléologique, c’est pourquoi Futuyma écrit que les mutations ne sont pas dirigées vers un besoin (alors qu’elles le sont dans un modèle de biologie intelligente comme CET).
En réalité certains évolutionnistes reconnaissent que le hasard joue un rôle essentiel. Guillaume Lecointre, via le site du Museum de l’Histoire naturelle dit:
« L’hérédité est le phénomène qui permet la transmission des caractères des parents à leur descendance. À ce stade, le hasard est encore à l’œuvre. Il détermine, comme dans une immense loterie, quels traits seront passés à la génération suivante. Ces traits ont alors la propriété d’héritabilité. »
« Comment expliquer l’évolution ? Le hasard et la sélection. Guillaume Lecointre écrit à ce sujet : « Si l’on s’autorise une métaphore, le hasard des mutations ou de toute autre source de variation est le carburant de l’évolution. La sélection, sorte de tamis très étroit, est le moteur de l’évolution. »
« Le hasard pur, le hasard seul, liberté absolue mais aveugle, à la racine même du prodigieux édifice de l’évolution. »
Jacques Monod, Le Hasard et la Nécessité, Éditions du Seuil, 1970, chapitre « Les frontières », p. 127
« L’évolution est liée au hasard : non pas qu’il n’y ait pas de mécanismes spécifiques mais les processus qui s’y rapportent dépendent d’événements non prévisibles et indépendants. »
Introduction à la biologie de l’évolution, Unisciel, section 4.3.3.
« La sélection naturelle n’est rien d’autre qu’une succession de hasards favorables. Fisher faisait remarquer que tout dépend de ce que le critique entend par hasard. »
Ruth Moore, Man, Time, and Fossils: The Story of Evolution (« L’homme, le temps et les fossiles : l’histoire de l’évolution »), p. 194.
L’idée est en fait que la nature choisirait parmi le hasard de l’évolution (supposant que quoi que ce de bon aurait été produit par le hasard en premier lieu). Le problème est que la nature ne choisit, ni ne sélectionne quoi que ce soit (voir les citations rapportées plus haut).
En bref, Benoît a tort de nier le rôle du hasard dans l’évolution. Coleman a raison quant à lui de dire que le temps et le hasard sont les moteurs de l’évolution. Coleman indique ensuite que les probabilités pour que 100 unités s’assemblent par hasard pour former une protéine sont insignifiantes.
Benoît répond:
« la probabilité qu’une seule protéine de 100 acides aminés s’assemble par accident est un très très gros nombre, la probabilité qu’une seule protéine se forme par accident est très faible… l’argument de l’infini improbabilité c’est quelque chose qui est tellement utilisé par les créationnistes mais ils se rendent pas compte que c’est un argument qui joue tellement contre eux aussi parce que si on joue au jeu des probabilités en fait, et ben la non évolution est tout aussu improbable que l’évolution elle-même, enfin l’évolution assemblage, dans leur concept à eux, c’est à dire cet homme de paille, l’assemblage des protéines se fait complètement par hasard dans un bocal d’eau chaude, «
Notons que l’évolution « assemblage par hasard dans un bocal d’eau chaude » c’est une idée de Darwin à la base:
« Mais si (et quel grand SI !) nous pouvions concevoir que, dans quelque petite mare chaude, contenant toutes sortes de sels ammoniacaux et phosphoriques, de la lumière, de la chaleur, de l’électricité, etc., un composé protéique se soit formé chimiquement, prêt à subir des changements encore plus complexes »
The Correspondence of Charles Darwin, volume 19.
Hélas on ne peut pas esquiver aussi facilement le problème des probabilités.
Les probabilités pour former une protéine sont astronomiquement défavorables, certains calculs estiment qu’assembler par hasard une protéine de 150 acides aminés (et fonctionnelle) nécessiterait environ 10^164 tentatives, ce qui dépasse de loin l’âge et la matière disponible de la Terre.10
Pour créer un microbe le plus simple possible, c’est-à-dire une cellule minimale capable de vivre et se reproduire dans un environnement de laboratoire, les recherches actuelles montrent qu’il faut environ 300 à 400 protéines différentes.1112
Même la cellule la plus simple doit:
- Lire et copier son matériel génétique (ADN -> ARN -> protéines) ;
- Maintenir son intégrité structurelle (membrane) ;
- Produire de l’énergie (ATP) ;
- Importer des nutriments et éliminer les déchets ;
- Réparer les dommages.
Ces fonctions exigent chacune plusieurs dizaines de protéines spécialisées, souvent organisées en complexes enzymatiques.
Les difficultés sont multiples.
La première repose sur la séquence des acides aminés, il faut avoir un ordre précis or il y a des trilliards de trillards de séquences possibles.
La deuxième concerne la chiralité. Les acides aminés existent généralement sous deux formes (L et D). Les protéines synthétisées par les ribosomes des organismes vivants utilisent presque exclusivement des acides aminés de forme L. Or la chimie livrée aux lois du hasard produira toujours un mélange 50/50. Avoir la bonne séquence n’est donc pas le seul problème, il faut avoir la bonne forme.
Il existe une troisième difficulté importante qui est la polymérisation, c’est-à-dire la formation de liaisons peptidiques entre les acides aminés dans des conditions prébiotiques. Je ne peux pas m’étaler ici mais pour unir deux acides aminés, il faut former une liaison peptidique, par une réaction dite de condensation qui libère une molécule d’eau. Le paradoxe est que l’eau, indispensable à la vie, défavorise thermodynamiquement la formation directe des liaisons peptidiques et favorise leur hydrolyse à l’équilibre.
Il y a 3 obstacles majeurs.
Le premier est thermodynamique. Dans une solution aqueuse ordinaire, l’équilibre favorise généralement les acides aminés libres plutôt que leur condensation directe.
Ensuite il y a la cinétique, c’est à dire que même lorsque les acides aminés sont proches, leur réaction est lente sans activation chimique appropriée.
Après il y a l’allongement des chaînes. Obtenir quelques acides aminés liés est une chose ; former une longue chaîne, sans dégradation ni réactions concurrentes, est nettement plus difficile.
Dans une revue publiée le 27 septembre 2024 dans Nature Reviews Chemistry, Daniel Whitaker et Matthew Powner expliquent (traduction):
« Cela présente des difficultés intrinsèques pour l’origine de la vie, notamment la manière dont la synthèse des polymères de condensation peut surmonter la pression thermodynamique de l’hydrolyse dans l’eau. »
Whitaker & Powner, On the aqueous origins of the condensation polymers of life, Nature Reviews Chemistry, 8, 817–832 (2024).
Les mathématiques sont clairement défavorables au modèle néodarwinien.
En réalité, la séquence des acides aminés d’une protéine est déterminée par une information codée dans l’ADN qui a été transmise par l’ARN messager et interprétée par une machinerie cellulaire complexe. C’est pourquoi les acides aminés ne sont pas assemblables au hasard car leur ordre dépend d’instructions codées.
Cette coordination entre information et système de lecture est un argument en faveur d’une conception intelligente. Le hasard, sans code ni mécanisme de traduction, ne peut pas réussir à fabriquer des protéines dans la cellule. C’est un peu comme si on essaie d’expliquer le contenu logique et organisé d’un livre « sans auteur ».
Aussi la durée de vie moyenne d’un ARN fonctionnel prébiotique (en ignorant un instant le probabilités défavorables) serait de l’ordre de quelques heures à quelques jours, ce qui est nettement insuffisant pour permettre l’auto-réplication, l’évolution darwinienne et la complexification graduelle.
L’un des piliers de l’hypothèse du « monde à ARN » est la possibilité qu’un ARN autocatalytique ait pu émerger spontanément mais cette étude démontre que, même si un tel ARN apparaissait par hasard, il se dégraderait très rapidement avant de pouvoir se copier. Cela rend invraisemblable l’idée qu’un tel système aurait pu amorcer une dynamique d’évolution chimique.
Les évolutionnistes comparent souvent l’apparition spontanée d’un ARN fonctionnel ou d’une protéine à une loterie, en bref que malgré une probabilité infime de gagner, des milliards d’années d’essais finiraient, disent-ils, par faire sortir la bonne combinaison. Mais cette analogie oublie une difficulté et c’est que le billet gagnant est périssable. La molécule obtenue se dégrade et ne reste donc pas indéfiniment acquise pendant que les autres étapes se mettent en place.
Il faudrait plutôt imaginer une loterie dans laquelle, après avoir décroché un premier gain exceptionnel, il faut réussir les étapes suivantes avant l’expiration du billet, faute de quoi l’avantage obtenu disparaît. Si ces étapes nécessitent elles aussi des événements très rares, leur attente doit tenir dans la courte fenêtre de stabilité de la première molécule (quelques heures).
Il y a des choses dont on sait qu’elles sont impossibles. L’abiogenèse en fait probablement partie.
Une autre étude s’appelle « Neo-Darwinism must Mutate to survive » et a été publiée en août 2022 dans le journal « Progress in Biophysics and Molecular Biology« .
Dans cette étude il s’agissait de s’interroger sur l’évolution darwinienne afin d’expliquer la diversité de la vie et ce que nous observons dans le monde. Après avoir analysé la question sous différents angles ils ont conclu que la macroévolution était invraisemblable ( avec une probabilité de 1050 sachant que dans l’univers il y a 1060 particules).
Un exemple concret qu’ils examinent est l’origine du cycle de Krebs, une chaîne métabolique complexe nécessitant environ 12 enzymes spécifiques. Voici ce qu’ils concluent:
- Ils admettent un scénario très généreux où la probabilité pour qu’une seule enzyme apparaisse par mutation serait de 1 × 10⁻⁵ (une chance sur cent mille).
- Mais pour obtenir les 12 enzymes nécessaires dans un même génome, par mutation et via sélection naturelle, la probabilité est estimée à environ 10⁻⁵¹.
- Ils qualifient ce niveau de probabilité d’« invraisemblable », rapportant qu’Émile Borel considérait qu’une chance inférieure à 10⁻⁵⁰ était négligeable.
Les chercheurs pointent du doigt les insuffisances du paradigme de la « la survie du plus apte » et considèrent que les mathématiques ne sont pas anodines et qu’il faut les prendre en compte à l’avenir dans les futures recherches.
L’argument de Coleman est donc concluant. Benoît poursuit:
l’infini improbabilité d’absence d’évolution elle est aussi gigantesque, on a cette vidéo d’une chaîne qui s’appelle « stated clearly »… dans cette vidéo en fait il nous parle des rétrovirus endogènes et comment ces rétrovirus endogènes déposent des séquences d’ADN dans notre propre génome à nous… le rapport avec les évolutions, c’est que ces séquences de gènes de virus qui sont dans notre ADN à nous, elles sont transmises à nos descendants, où on retrouve les mêmes séquences des mêmes virus au même endroit, c’est un virus héréditaire en quelque sorte, alors il est pas actif le virus mais il est quand même endogène, ce qui constitue une énorme partie de ce qu’on appelle « l’ADN poubelle », l’ADN non codant, on a énormément d’ADN non codant, une partie de cet ADN non codant, c’est du rétrovirus endogène, c’est de l’ADN de virus qui a infecté les êtres-humains par le passé et dont les « traces fossiles » sont encore visibles dans notre ADN. Et le truc c’est que si ça se transmet d’ancêtre à descendant ben on peut remonter très loin en réalité, à des rétrovirus qui ont pu s’insérer dans l’ADN chez l’ancêtre en commun de tous les primates et on va retrouver cette même séquence de virus endogène partout chez tous les primates exactement au même endroit, on va retrouver que tous les 300 espèces de primate, ont tous la même séquence du même virus endogène, insérée exactement au même endroit dans le chromosome et ça si vous essayez de faire s’insérer le même virus exactement au même endroit sur le même chromosome chez 300 espèces de primate, indépendamment les unes des autres, eh ben voici la probabilité que ça arrive est 5.88 x 10 puissance 1418. Donc l’argument de l’infini improbabilité s’applique aussi bien à l’évolution qu’à la non évolution en réalité… Ce chiffre gigantesque c’est l’improbabilité que nous n’ayons pas d’ancêtre en commun avec le chimpanzé.
Notons avant de parler des rétrovirus que la notion « d’ADN poubelle » est scientifiquement réfutée. Ce paradigme a été remis en cause ces dernières années avec des travaux récents (ENCODE, Nature 2021, séquençage complet 2022), qui montrent qu’une grande partie de ces régions, dites non-codantes, joue en fait un rôle régulateur, structural ou fonctionnel, ce qui invalide l’idée d’un génome largement constitué de « rebuts évolutifs ».
Avec l’avancée des technologies de séquençage et surtout les travaux de l’ENCODE project (2007, 2012), il est apparu que la majorité du génome est en réalité biologiquement actif : environ 80 % des séquences montrent une fonction biochimique, qu’il s’agisse de régulation, de production d’ARN non codants, de promoteurs, d’enhancers ou d’autres éléments essentiels. Les publications ultérieures, y compris dans Nature (2021), ont confirmé que le génome humain contient une multitude d’éléments fonctionnels non codants, bien plus nombreux que les gènes protéiques.
Ewan Birney, coordinateur principal des analyses du projet ENCODE, a déclaré:
« …il est probable que les 80 % [de fonctionnalité biologique de l’ADN] atteignent les 100 % », et « nous n’avons pas vraiment de grands segments d’ADN redondant. Cette métaphore de l’ADN poubelle n’est pas très utile. »
Yong, E. ENCODE: The Rough Guide to the Human Genome. Discover Magazine. Publié sur discovermagazine. com le 8 Septembre, 2012.
Revenons à l’argument sur les rétrovirus. Notons tout d’abord la méthodologie une fois de plus. Il propose une argumentation par association d’idées. Il ne répond pas à l’impossibilité de former une protéine naturalistiquement (sans guidance) et part sur un sujet séparé. Ainsi l’argument B doit venir à la rescousse du sujet A non élucidé.
On appelle aussi cela la technique du hareng rouge (l’expression vient de l’odeur forte d’un poisson fumé qu’on trainait autrefois pour perturber le flair des chiens de chasse.), c’est un procédé de diversion qui consiste à lancer une fausse piste pour égarer un auditoire ou un lecteur. En rhétorique c’est un sophisme qui consiste à dévier une discussion vers un sujet secondaire pour éviter le problème principal.
J’ai traité les probabilités donc je vais revenir sur les rétrovirus, c’est un sujet tout à fait digne d’intérêt. Benoît récupère ici l’argument des probabilités, sauf que cet argument doit reposer sur une base logique. L’improbabilité de former une protéine par hasard, qui provient d’ailleurs d’études évolutionnistes comme celle fournie plus haut, repose sur le postule néodarwinien, c’est donc dans le cas précis néodarwinien que les probabilités sont « improbables ».
Idem avec les probabilités d’avoir les rétrovirus aux mêmes endroits entre diverses espèces. Le calcul de « Stated Clearly » est juste, sauf qu’il ne s’applique qu’au paradigme néodarwinien. Dans ce cadre, oui, on obtiendrait jamais les rétrovirus aux mêmes emplacements. Mais le créationnisme ne fonctionne pas sur les principes néodarwiniens, de même que le néodarwinisme ne repose pas sur les principes créationnistes.
L’interprétation des rétrovirus chez les créationnistes est assez simple.
Premièrement, contrairement à ce qui pouvait être revendiqué par le passé, les rétrovirus ne sont pas de l’ADN poubelle. De nombreuses séquences d’origine rétrovirale participent à des fonctions biologiques comme la régulation des gènes, l’immunité antivirale, le développement embryonnaire ou encore la formation du placenta (syncytines). Ils ne sont pas simplement utiles mais vitales. Ces séquences ne ressemblent donc pas à des accidents mais plaident pour un dessein intelligent (il eut fallu qu’elles soient réellement inutiles pour que le scénario évolutif ait un peu de force).
Deuxièmement, les rétrovirus ne proviennent pas nécessairement d’infections anciennes. Cela est tenu pour acquis dans les discours évolutionnistes mais ce sont des scénarios non observés. Les expériences modernes semblent plutôt documenter des origines recombinantes1314, soient endogènes, ils ne proviennent pas de l’extérieur.
Il y a deux catégories de rétrovirus, ceux qui sont présents chez tous les membres d’une espèce et ceux qui sont polymorphes (présent chez certains individus d’une espèce).
En créationnisme, les rétrovirus sont principalement des séquences fonctionnelles créées à l’origine. Que les mammifères en partagent un certain nombre est normal puisqu’ils fonctionnent de manière similaire, c’est à dessein qu’ils ont été placés là où ils sont. Ainsi la présence des rétrovirus à des endroits précis n’est pas nécessairement due à des infections d’ancêtres communs mais à leur conception intelligente à la création.
Les rétrovirus polymorphes peuvent être liés à des infections mais aussi à des origines recombinantes également.
L’argument général sur les rétrovirus de la part des évolutionnistes devient plus compliqué quand on regarde de près la situation. Par exemple dans une étude publiée dans Current Biology, des chercheurs ont identifié un provirus nommé HERV-K.15 Ce dernier possède la distribution suivante:
- Présent chez le chimpanzé.
- Présent chez le bonobo.
- Présent chez le gorille.
- Absent chez l’humain, à l’emplacement correspondant.
Cela constitue une véritable discordance phylogénétique. Si une insertion rétrovirale avait été fixée chez l’ancêtre commun des gorilles, des chimpanzés et des humains, on s’attendrait à la retrouver chez les trois espèces.
De manière percutante, chez l’humain, les auteurs ont trouvé le site de préintégration intact. Autrement dit, l’emplacement génomique correspondant ne présente pas de trace de cette insertion.
Evidemment il existe des solutions scénaristiques évolutives pour expliquer ce résultat inconvenant mais à tout le moins, nous voyons que la situation analysée de près n’est jamais aussi simple que présenté dans les présentations généralistes.
Il y a un autre élément supplémentaire qui ne ressort pas dans les propos de Benoît sur les probabilités quant à des insertions indépendantes. C’est que l’insertion éventuelle des ERV chez un hôte n’est pas si « hasardeuse » que ça, ce n’est pas comme une loterie.
Sverdlov (1998) a rapporté des régions préférentielles, appelées hotspots, où les intégrations peuvent être beaucoup plus fréquentes. Une étude citée dans cette revue rapporte ainsi des sites utilisés jusqu’à 280 fois plus fréquemment que ne le prédirait une répartition aléatoire.16
Je crois que nous avons encore beaucoup de choses à découvrir sur les ERV. Je n’ai pas trouvé d’études complètent documentant clairement le nombre de séquences ERV chez l’homme, chez le chimpanzé et chez le gorille.
Deux études importantes sur le sujet des ERV partagés sont Gemmell (2015) et Grandi (2018) qui ont documenté quelques centaines de loci ERV orthologues entre humains, chimpanzés et gorilles. Cela est peu quand on considère qu’il y a environ 100 000 à 450 000 éléments rétroviraux dans le génome humain (selon ce qu’on prend en compte). D’ailleurs certaines comparaisons de Grandi et al. (2018) semblent montrer davantage de similarité entre humain et gorille qu’entre humain et chimpanzé et voire autant entre humain et orang-outan qu’entre humain et chimpanzé.
La grande étude de 2025 dans Nature (Yoo et al) n’apporte pas plus de lumière concernant les ERV partagés. En fait, elle a plutôt confirmé certains calculs créationnistes qui indiquaient que la similarité générale entre humain et chimpanzé était aux alentours de 85% plutôt que 98 ou 99% comme revendiqué pendant des années.
Les chercheurs ont en effet rapporté que 12,5 à 27,3 % des séquences des génomes comparés ne s’alignent pas directement ou présentent des difficultés d’alignement univoque. Ces 12,5 à 27,3 % de séquences génomiques qui ne s’alignent pas simplement entre les grands singes peuvent contenir des ERV, notamment des copies répétées, des fragments d’ERV et des LTR isolés. Cela fournit l’intérêt d’un futur inventaire exhaustif pour déterminer combien d’ERV sont réellement orthologues, spécifiques à chaque espèce ou situés dans des régions dont la correspondance reste incertaine.
Dans le cadre d’une similarité de 98-99% les évolutionnistes devaient expliquer comment on avait créer des dizaines de millions de différences génétiques en quelques millions d’années, ce qui n’était pas simple. Maintenant, à moins de 90% de similarité, il faut expliquer plusieurs centaines de millions de différences génétiques avec le même intervalle de temps disponible. Il y a trop de différences à générer en seulement quelques millions d’années. Les scénarios évolutifs précédent nécessitaient 1 ou 2% de différence pour fonctionner. Comme on le constate, il faut faire attention aux arguments péremptoires, l’histoire finit souvent par renverser les raisonnements qui paraissaient invulnérables.
Bref deux insertions d’ERV aux mêmes emplacements impliquent peut-être un événement ancestral mais celui-ci n’est pas forcément une infection commune. Il peut tout simplement être une conception commune.
L’« escape hypothesis », ou hypothèse de l’échappement, est particulièrement intéressante dans ce débat sur les ERV, car elle envisage que des virus infectieux aient pu provenir d’éléments génétiques initialement présents à l’intérieur des cellules plutôt que l’inverse.
Les créationnistes s’appuient en général sur cette hypothèse pour défendre un modèle d’une origine principalement endogène des ERV.
Il y a encore un argument intéressant à développer.
Les syncytines sont des protéines dérivées de gènes rétroviraux env. Elles permettent la fusion de cellules indispensable à la formation de certaines structures placentaires. Or les chercheurs ont découvert que différents mammifères emploient des syncytines d’origines distinctes.
| Mammifères | Syncytines identifiées |
|---|---|
| Humains et autres primates | Syncytine-1 et syncytine-2 |
| Souris et autres rongeurs apparentés | Syncytine-A et syncytine-B |
| Lapins | Syncytine-Ory1 |
| Ruminants | Autres protéines d’enveloppe rétrovirale |
| Carnivores | Autres syncytines |
Les syncytines humaines et murines ne sont donc pas simplement des versions légèrement modifiées d’un même gène ancestral. Elles proviennent d’événements distincts d’acquisition ou de domestication de séquences rétrovirales.
Dupressoir et al. (2005) parlent explicitement d’acquisitions indépendantes ayant abouti à une fonction physiologique convergente, une fonction biologique essentielle.
Certaines syncytines sont indispensables à la formation normale du placenta et à la survie embryonnaire, comme l’ont montré des expériences d’inactivation génétique chez la souris.
Il s’avère que les chercheurs ont documenté des origines génétiques indépendantes où plusieurs lignées de mammifères accomplissent une fonction similaire grâce à des gènes rétroviraux différents, situés à des emplacements génomiques distincts.
C’est une convergence difficile à expliquer par hasard, le scénario évolutif nécessite plusieurs acquisitions rétrovirales indépendantes, suivies de leur intégration dans un programme embryonnaire complexe et précisément régulé.
Il est aisé d’interpréter cette convergence comme une « conception convergente » où un même principe fonctionnel est employé dans plusieurs groupes de mammifères avec des composants génétiques différents.
Il faut aussi souligner que la formation d’un placenta nécessite bien davantage que la seule présence d’une syncytine, elle implique une coordination entre tissus maternels et embryonnaires.
Pourquoi faudrait-il supposer plusieurs acquisitions indépendantes de gènes rétroviraux pour assurer une fonction essentielle que possèdent déjà différentes lignées de mammifères?
On peut proposer qu’un concepteur ait employé un même principe biologique c’est à dire la fusion cellulaire, au moyen de composants génétiques différents selon les groupes.
L’argument est renforcé par une revue de Dupressoir, Lavialle et Heidmann (2013), qui confirme que les syncytines ont été recrutées indépendamment à plusieurs reprises et que certaines sont absolument nécessaires au développement placentaire.
Le cas des syncytines constitue un argument intéressant parce qu’il présente une situation différente de celle des ERV orthologues généralement invoqués en faveur de l’ascendance commune.
Dans le cas classique des ERV partagés, l’argument évolutionniste repose sur la présence de séquences rétrovirales apparentées aux mêmes emplacements génomiques chez différentes espèces.
Avec les syncytines du placenta, nous observons autre chose :
- Même fonction biologique : la fusion de cellules participant à la formation du placenta.
- Origines rétrovirales distinctes : les syncytines des primates, rongeurs et lapins proviennent de différentes acquisitions de gènes env.
- Emplacements génomiques différents : les gènes correspondants ne sont pas orthologues entre ces grands groupes.
- Importance fonctionnelle : certaines syncytines sont indispensables au développement normal du placenta.
Chez différents groupes de mammifères, une même fonction placentaire essentielle repose sur des protéines d’origine rétrovirale distinctes, situées à des emplacements génomiques différents.
Les évolutionnistes expliquent cette situation par plusieurs acquisitions indépendantes, suivies du recrutement de ces protéines dans le développement embryonnaire.
Une interprétation créationniste y voit plutôt l’utilisation de solutions fonctionnelles comparables dans des organismes distincts.
Il y a bien des problèmes avec le scénario évolutif des ERV.
On peut encore citer les horloges moléculaires. Les données génétiques indiquent que ces séquences ne sont pas vieilles de millions d’années. A l’aide d’outils comparatifs de la génétique évolutive, des scientifiques ont comparé les séquences génétiques des virus à leurs homologues dans les génomes animaux et ont constaté que tout au plus, la variation de ces séquences indique qu’elles ne peuvent pas avoir plus de 50 000 ans.17
Le biologiste et virologue Edward C. Holmes a écrit en début de son article:
« Bien que l’origine ultime des virus à ARN demeure incertaine, il semble raisonnable de supposer que ces agents infectieux ont une longue histoire évolutive et qu’ils sont apparus en même temps que les premières formes de vie cellulaires, ou peut-être avant celles-ci. Même si les virus à ARN que nous observons aujourd’hui ne remontent peut-être pas aussi loin, les éléments indiquant que certains virus à ADN ont évolué avec leurs hôtes vertébrés pendant de nombreux millions d’années conduisent naturellement à envisager une histoire tout aussi ancienne pour les virus à ARN.
Pourtant, la comparaison de leurs séquences génétiques donne une image très différente de l’origine des virus à ARN : en utilisant les meilleures estimations des taux de changement évolutif — les substitutions de nucléotides — et en supposant l’existence d’une horloge moléculaire approximative, on peut en déduire que les familles de virus à ARN circulant aujourd’hui ne seraient apparues que très récemment, probablement il n’y a pas plus d’environ 50 000 ans.
Par conséquent, si les taux d’évolution sont exacts et relativement constants, les virus à ARN actuels pourraient être apparus plus récemment que notre propre espèce. »
Cela représente probablement un développement assez ironique que les éléments mentionnés invitent à conclure que les virus sont probablement issus de leurs hôtes et non l’inverse. Comme le souligne Peter Borger, biologiste moléculaire et biochimiste: 18
« La réponse la plus parcimonieuse est que les virus à ARN ont obtenu leurs gènes de leurs hôtes.«
En bref, les virus « mammaliens » n’existaient peut-être pas avant la chute, ils se seraient développés à partir de séquence d’ADN déjà présentes chez les animaux et les humains.
4.micro vs macroévolution
Coleman conteste ensuite le 4ème postulat de l’évolution qui est que les variations mineures observées chez les espèces, comme la différence de couleur de pelage ou la différence de taille, seraient des preuves de la macroévolution. Benoît répond:
« On voit de petites différences génétiques, ça ne peut pas devenir de grosses différences génétiques, ça ne peut pas devenir de la macroévolution. 3 objections à ça: la première ben c’est que Monsieur n’a pas l’air d’être familier avec la métaphore que j’aime beaucoup mais qui marche tellement bien, Monsieur n’a pas l’air d’être familier que le Sahara, l’effet de grain de sable et que oui on peut accumuler des grains de sable jusqu’à former un désert, ça prend beaucoup de temps… et pourtant le temps joue bien en faveur de l’accumulation des grains de sable pour former des déserts.«
L’analogie des grains de sable qui s’accumulerait est connu par tous les créationnistes qui ont un jour débattu avec des évolutionnistes. L’analogie comporte cependant quelques défauts.
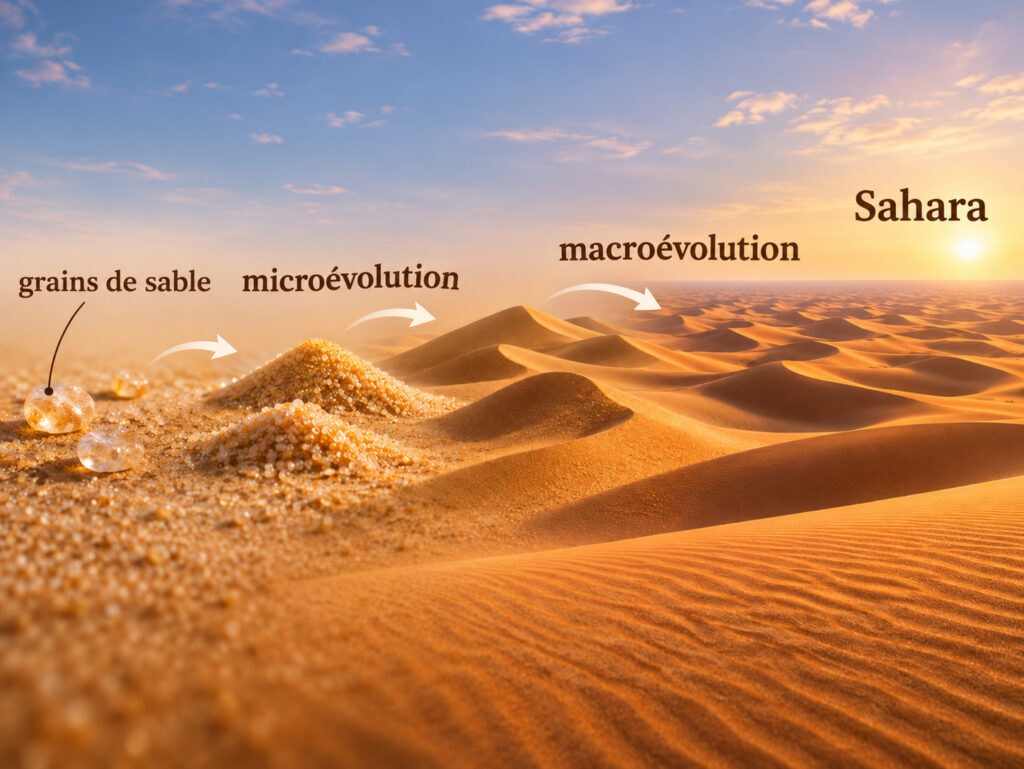
Les évolutionnistes imaginent l’évolution comme l’accumulation progressive de grains de sable formant un désert. En réalité les phénomènes de spéciation ressemblent davantage à la séparation d’un grand tas de sable initial en plusieurs petits tas, chacun ne conservant qu’une partie des grains du tas initial.
L’analogie correcte est plutôt qu’on part de plusieurs gros tas de sable (des genres créés) qui tout au long de l’histoire se divisent en petits tas de sable (diversification au sein des genres).
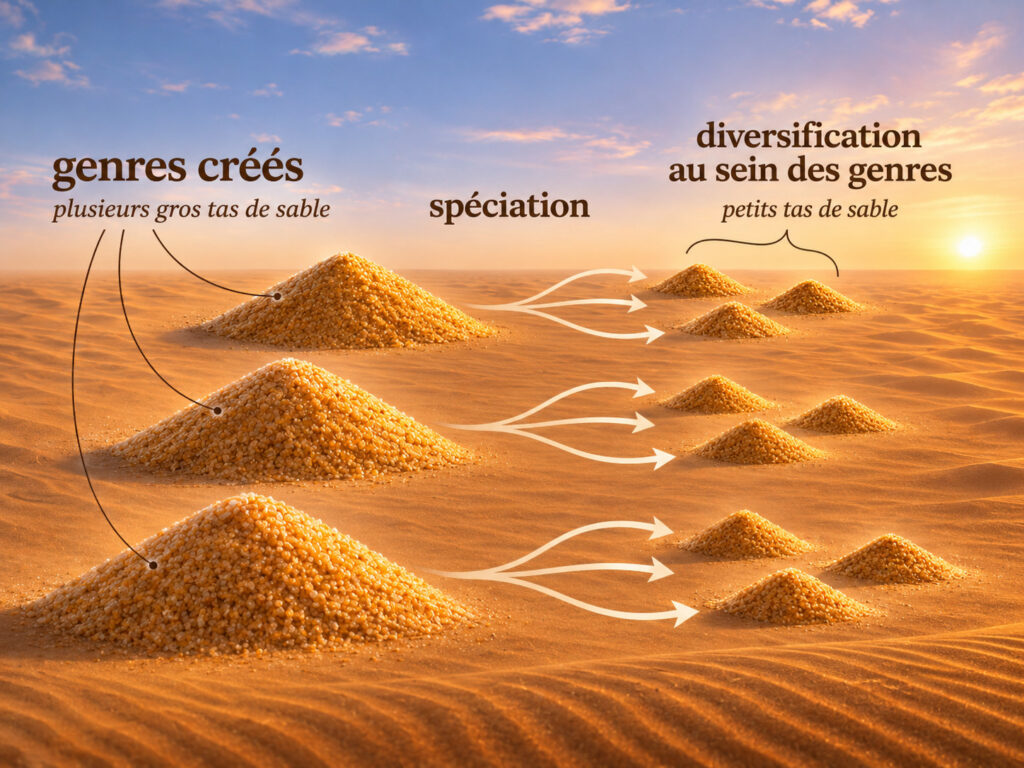
Le problème de la version « saharienne » de l’analogie évolutive est qu’elle est extrapôlable à l’infini.
Extrapoler, c’est prolonger une tendance ou un modèle au-delà du domaine où on l’a observé. Or un modèle n’est validé que là où on a des données. Entre deux points mesurés (l’interpolation), on prend peu de risques. En dehors, rien ne garantit que les mêmes lois s’appliquent car des seuils, des effets non linéaires ou de nouveaux phénomènes peuvent apparaître. Une courbe qui monte linéairement sur l’intervalle étudié peut saturer, s’effondrer ou changer de nature juste après.
On peut avoir quelques exemples du danger de l’extrapolation.
La mécanique de Newton fonctionne parfaitement aux vitesses ordinaires. Extrapolée aux vitesses proches de celle de la lumière, elle devient fausse, et il faut utiliser la relativité.
En pharmacologie, on extrapole de l’animal à l’homme et des fortes doses aux faibles doses. C’est indispensable, mais cela a parfois conduit à des accidents graves en essais cliniques.
Le fait qu’un garçon puisse grandir de 2m en 20 ans ne signifie pas qu’il mesurera 6m quand il aura 60 ans. C’est pour des raisons génétiques que la croissance fini par s’arrêter.
De la même manière ce sont pour des raisons génétiques que les capacités adaptatives des animaux ont une limite. Un ancêtre riche génétiquement peut effectivement produire une descendance variée en termes de gabarits, de couleurs, de longueurs de poils et d’autres caractères mais ceux-ci ne sont que les variations d’un même plan initial qui lui reste stable.
Les descendants sont toujours semblables aux parents parce que les mécanismes de réplication de l’ADN et de réparation sont fidèles. La fidélité est très élevée, la copie de l’ADN laisse typiquement de l’ordre d’une erreur pour un milliard à dix milliards de nucléotides copiés, après correction. L’ordre de grandeur varie selon les organismes et les cellules. Cette précision repose sur plusieurs mécanismes complémentaires.
| Mécanisme | Fonction |
|---|---|
| Sélection à la copie | L’ADN polymérase sélectionne le nucléotide complémentaire de celui du brin modèle. |
| Relecture immédiate | Une activité de correction retire les nucléotides mal incorporés et permet leur remplacement. |
| Réparation après copie | D’autres protéines repèrent et corrigent les erreurs ayant échappé à la relecture. |
Ces trois étapes sont documentées expérimentalement et des systèmes supplémentaires réparent aussi les dommages subis par l’ADN entre les réplications.
Cela explique une grande partie de la stabilité, l’information héréditaire est copiée, relue et réparée avec une précision remarquable, sans être parfaitement immuable (entropie génétique, voir John Sanford). La reproduction sexuée mélange surtout des variantes déjà présentes chez les parents, elle ne recrée pas le génome au hasard à chaque génération.
Benoît poursuit sa critique:
« Deuxième objection à ça, Stephen Jay Gould en 1976 je crois, donc y a pas vraiment d’excuse pour pas être au courant, Stephen Jay Gould que les créationnistes adorent citer hors contexte, a sorti un livre qui nous parle des hétérochronies de développement, il nous dit quoi dans ce livre, ben que y a pas besoin de faire de grosses différences génétiques pour obtenir de grosses différences phénotypiques ou dit autrement, on peut changer le tempo de l’évolution avec un simple changement génétique, en fait la génétique c’est juste une série d’interrupteurs sur le développement et il suffit de faire une mutation sur un interrupteur pour changer tout le développement, donc pour changer toute l’embryologie et donc avoir de grandes conséquences, à une seule petite mutation… l’évolution ça marche pas en grosse mutation égal grosse différence, petite mutation peut provoquer grosse différence. Donc c’est pas comme ça que ça marche.«
Benoît ici semble se déporter sur un modèle contradictoire au premier modèle invoque, qui était gradualiste en nature avec des grains de sable s’accumulant pour former un désert. Maintenant il indique que le désert pourrait se former presque d’un coup, sans qu’il n’y ait besoin d’accumuler de petits grains de sable, on aurait directement un gros tas de sable.
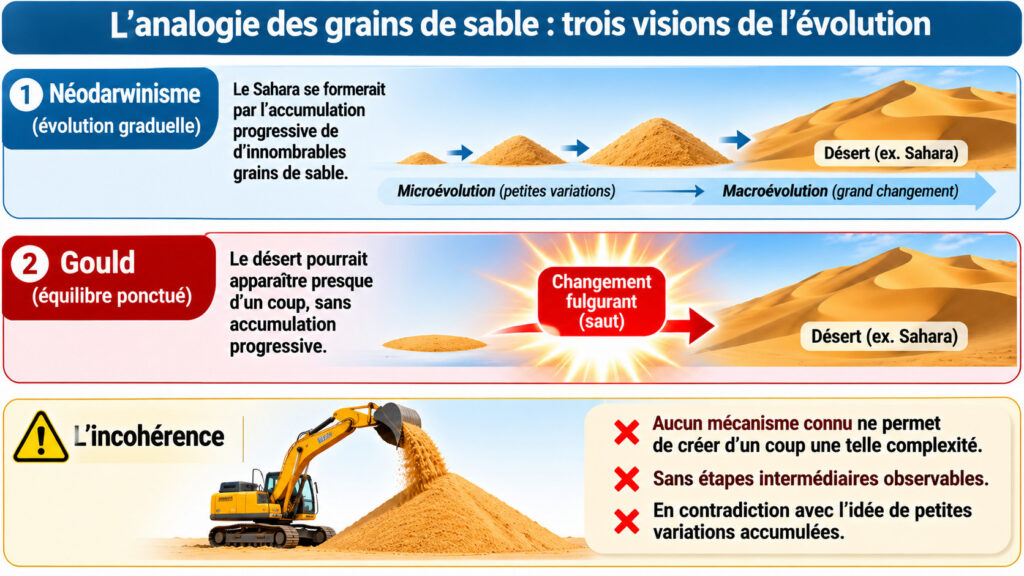
La citation de Gould, qu’aimerait les créationnistes, selon Benoît, est probablement celle-ci:
« L’absence de preuves (fossiles) pour les étapes intermédiaires entre les transitions majeures dans la conception organique, et en fait notre incapacité, même dans notre imagination, à construire des intermédiaires fonctionnels dans de nombreux cas, a été un problème tenace et persistant pour les récits graduels de l’évolution »
Gould, S.J., Is a new and general theory of evolution emerging? Paleobiology 6:119–130 (p.127), 1980.
Sinon c’est celle ci:
« Tous les paléontologues savent que les archives fossiles contiennent très peu de formes intermédiaires ; les transitions entre les grands groupes sont généralement abruptes.
Même si nous n’avons aucune preuve directe de transitions progressives, pouvons-nous inventer une séquence raisonnable de formes intermédiaires, c’est-à-dire d’organismes viables et fonctionnels, entre les ancêtres et les descendants ?
À quoi peuvent bien servir les stades initiaux imparfaits de structures utiles ?
À quoi sert une demi-mâchoire ou une demi-aile ?«
Gould, Stephen Jay. 1977. The Return of Hopeful Monsters. Natural History 86(6): 22–30.
Gould, tout évolutionniste qu’il fut, avait reconnu l’absence de transitions dans le registre fossile, celles qui avaient été prédites par Darwin. Les évolutionnistes rétorquent que les créationnistes citent Gould hors contexte mais cela n’est pas vrai. Les créationnistes n’indiquent pas que Gould concluait à un scénario créationniste mais juste qu’il reconnaissait l’absence de gradualisme et de transitions dans le registre fossile.
Il suffit de relire ces travaux dans les années 70 pour s’en rendre compte. Sa théorie des équilibres ponctués est justement invoquée pour expliquer pourquoi on ne trouve pas les transitions, ce serait parce que l’évolution se serait produite rapidement dans le passé. Julien Benoît en parle en mentionnant les hétérochronies de développement, cette idée qu’une petite mutation pourrait faire une grosse différence.
Gould n’est d’ailleurs pas le seul évolutionniste à avoir reconnu l’absence de transitions.
Le paléontologue David Raup a dit également:
« Bon, nous sommes maintenant 120 ans après Darwin et la connaissance du registre fossile a été grandement étendue…
Le registre de l’évolution est toujours de manière surprenante, hachée, et ironiquement, nous avons encore moins d’exemple de transitions évolutives que nous n’en avions à l’époque de Darwin…
Quelques cas classiques de changement darwinien dans le registre fossile ont dû être écartés ou modifiés après résultat d’information plus détaillée .«D.Raup, “Conflicts Between Darwin and Paleontology, “Field Museum of Natural History Bulletin 50, no 1 (1979) : 25
L’un des principaux collaborateurs de Gould dans sa nouvelle théorie était le Dr Steven Stanley, qui a noté :
« Les archives fossiles connues ne documentent aucun exemple d’évolution phyletique [c’est-à-dire impliquant un changement fondamental de plan corporel] accomplissant une transition morphologique majeure, et ne fournissent donc aucune preuve que le modèle gradualiste puisse être valide. »
S. Stanley, 1977, Macroevolution, San Francisco, CA: Freeman, p. 39.
Une chose est certaine : si des fossiles transitionnels abondants existaient, ils seraient proclamés haut et fort comme preuve de l’évolution. Il ne serait pas nécessaire de recourir à des « chaînons manquants » hypothétiques, ni à des bonds évolutifs rapides.
« Les transitions majeures dans l’évolution biologique montrent le même schéma d’émergence soudaine de formes diverses à un nouveau niveau de complexité. Les relations entre les grands groupes au sein d’une nouvelle classe émergente d’entités biologiques sont difficiles à décrypter et ne semblent pas correspondre au schéma de l’arbre qui, suivant la proposition initiale de Darwin, reste la description dominante de l’évolution biologique.
Les cas en question incluent l’origine des molécules complexes d’ARN et des repliements de protéines ; les grands groupes de virus ; les archées et les bactéries, et les lignées principales au sein de chacun de ces domaines procaryotes ; les supergroupes eucaryotes ; et les embranchements animaux. Dans chacun de ces points charnières de l’histoire de la vie, les « types » principaux semblent apparaître rapidement et entièrement équipés des caractéristiques distinctives du nouveau niveau d’organisation biologique correspondant. »
E. V. Koonin, 2007, The Biological Big Bang model for the major transitions in evolution, Biology Direct, 2: 21.
Il y a donc un constat intéressant à faire.
Les évolutionnistes classiques, les gradualistes, nous disent qu’on ne voit pas la macroévolution dans le présent, ce qui est vrai, parce que l’évolution prend du temps. L’idée est alors d’aller regarder dans le passé, c’est à dire le registre fossile, or, on ne trouve pas, selon les paroles d’évolutionnistes (excluant les créationnistes un moment), de transitions entre les grands groupes.

Ainsi, on ne voit, ni la macroévolution dans le présent, ni dans le passé.
C’est alors qu’intervient un deuxième groupe d’évolutionniste: ceux qui se réclament ou intègrent les propositions de Stephen Jay Gould avec cette notion « d’évolution rapide » suivi de longues stases (qui expliquent pourquoi les espèces restent inchangées tout le long des étapes géologiques dans lesquelles elles apparaissent).
Mais si l’évolution peut être rapide, comme indiqué par Gould, et soutenu par Benoît, pourquoi n’observe t’on pas dans le présent d’énormes changements macroévolutifs, viables et fonctionnels? Si seulement une petite mutation peut produire un gros changement?
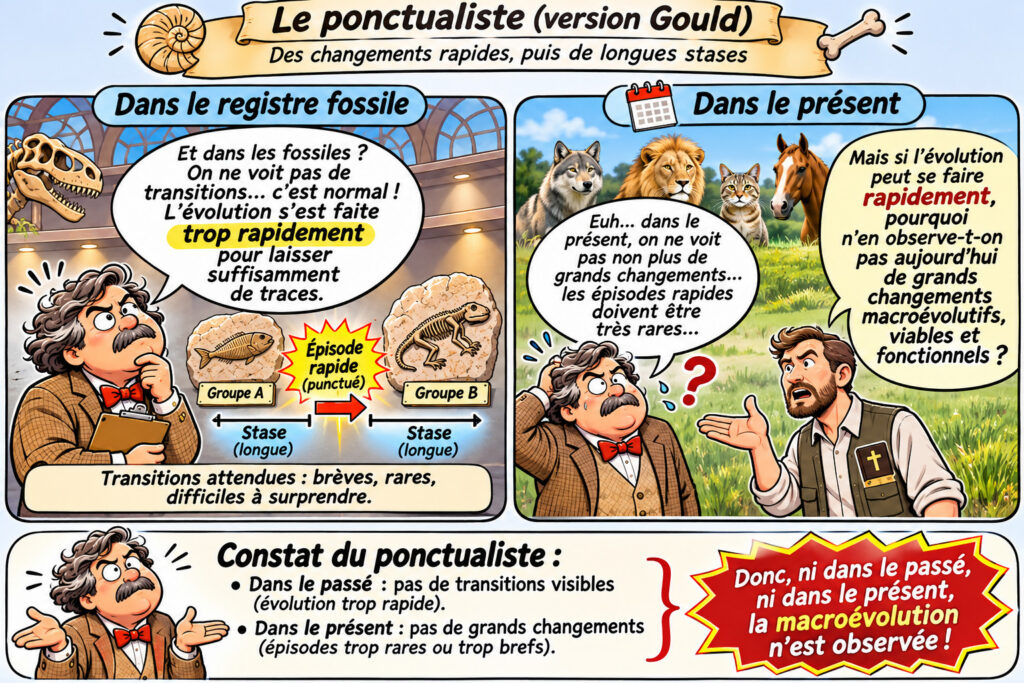
Il semblerait qu’en plusieurs milliers d’années d’histoire on ait jamais observé de tels changements se produire. Certes il y a une diversité de félins, de canidés, d’équidés ou d’ursidés mais où sont les exemples d’organismes « intermédiaires » entre deux grands groupes?
C’est un bel exemple de « pile je gagne, face tu perds »: on ne voit pas l’évolution dans le présent parce qu’elle se produit lentement, et on ne la voit pas dans le passé parce qu’elle s’est produite trop rapidement.
Continuons avec Benoît:
« Et la troisième objection à ça, c’est qu’il utilise l’argument des chiens, qui est probablement le pire argument qu’il aurait pu utiliser, donc il dit que les chiens peuvent avoir différentes tailles, ce n’est pas de la macroévolution, en essence c’est ça qu’il nous dit, ben sauf que la limite entre macro et micro évolution, comme l’accumulation de grains de sable et un désert, elle est pas si évidente que ça, c’est une limite qui est éminament grise mais on l’a placé globalement au moment où y a plus interfécondité, c’est à dire à partir du moment où deux trucs n’arrivent plus à se reproduire ensemble, y a macro évolution, y a spéciation et donc y a macro évolution, en l’occurence, vous aurez beaucoup de mal à faire se reproduire un chihuahua et un dogue allemand parce qu’ils sont plus vraiment anatomiquement compatibles, je dis pas que ça peut pas arriver, avec une seringue on peut arriver à tout faire, par contre dans la nature, ça va être très compliqué de voir des dogues allemands se reproduire avec des chihuahuas, donc c’est très dommage pour lui en fait d’avoir choisi l’exemple du chien comme un exemple de non macro évolution, parce qu’en réalité c’est précisément un cas dans la zone grise dont je vous parlais, c’est précisément un cas de « ouais mais là en réalité c’est plus tellement possible de reproduire un chihuahua avec un dogue allemand en réalité », on est train de la franchir la barrière de la macroévolution.«
Benoît place le seuil de la macroévolution quand l’interfécondité n’est plus possible.
Voici quelques définitions de la macroévolution dans des documents évolutionnistes:
« Évolution se produisant au-dessus du niveau de l’espèce, comprenant l’apparition, la diversification et l’extinction des espèces sur de longues périodes de temps évolutif. »
Zimmer & Emlen, Evolution: Making Sense of Life, 2e éd. (2016)
« Terme vague désignant généralement l’évolution de changements phénotypiques, habituellement suffisamment importants pour classer la lignée ayant subi ces changements et ses descendants dans un genre distinct ou dans un taxon de rang supérieur. »
Evolutionary Biology 4th edition, by Futuyma and Kirkpatrick
« La microévolution se produit à petite échelle (au sein d’une seule population), tandis que la macroévolution se produit à une échelle qui dépasse les frontières d’une seule espèce. »
Understanding Evolution website https://evolution.berkeley.edu/evolibrary/home.php
« La macroévolution est l’évolution à une échelle égale ou supérieure à celle de l’espèce, par opposition à la microévolution, qui désigne des changements évolutifs plus modestes dans les fréquences alléliques au sein d’une espèce ou d’une population. La macroévolution et la microévolution décrivent des processus fondamentalement identiques, mais à des échelles de temps différentes. »
Wikipédia (anglais), article « Macroevolution »
« La macroévolution, définie au sens large comme l’évolution au-dessus du niveau de l’espèce. »
Approaches to Macroevolution: 1. General Concepts and Origin of Variation – Evol Biol. 2017 Jun 3;44(4):427–450. doi: 10.1007/s11692-017-9420-0 (emphase ajoutée)
Comment les évolutionnistes considèrent-ils les chiens?
« Les différences de taille et de proportions entre certaines races sont aussi importantes que celles observées entre n’importe quels genres sauvages, mais tous les chiens sont clairement membres d’une même espèce. »Evolution of the wolf – Wikipedia
Donc selon les critères évolutifs, et sans intégrer de raisonnements créationnistes, les dogues allemands et les chihuahuas ne représentent pas un cas de macroévolution car ils font partie de la même espèce.
Malgré leurs différences de taille et de proportions, les dogues allemands et les chihuahuas possèdent:
- Le même plan d’organisation anatomique,
- Les mêmes types d’organes,
- Les mêmes grands systèmes biologiques,
- La même organisation fondamentale du développement embryonnaire, avec des variations dans les mécanismes régulant la croissance.
Leurs différences concernent principalement les dimensions, les proportions, la morphologie et certains caractères physiologiques. Et comme l’indiquait Benoît, ils peuvent produire une descendance fertile avec une assistance humaine.
Du point de vue créationniste, il faut distinguer deux phénomènes:
- La variation au sein d’un plan corporel existant avec modification de la taille, des proportions, du pelage, etc.
- L’apparition de nouveaux plans d’organisation biologique avec des transformations évolutives beaucoup plus profondes, discutées dans le cadre de la macroévolution et qui ne concerne pas nécessairement la taille ou le poids.
La majorité des races de chiens modernes ont été sélectionnées et fixées au cours des derniers siècles seulement, souvent entre le 18ᵉ et le 20ᵉ siècle, avec quelques exceptions plus anciennes. C’est une preuve que le génome canin a été conçu avec une capacité de variation rapide et une démonstration que les « espèces » peuvent se diversifier en morphologie très rapidement après le Déluge (sur quelques millénaires), ce qui soutient le modèle des baramins post-Noé.
Leur variabilité extrême s’est manifestée sans apparition de nouveaux gènes, mais par réorganisation de gènes existants. Cela appuie l’idée que de grands changements morphologiques ne nécessitent pas de longues périodes évolutives. Les chiens ne sont pas une preuve de l’évolution puisque leur variation a eu lieu en quelques siècles. C’est un soutien à la variation rapide post-déluge de tous les groupes d’organismes.
En 1980, environ 150 des plus grands théoriciens de l’évolution au monde s’étaient réunis à l’Université de Chicago pour une conférence intitulée « Macroévolution ». Leur objectif était: « examiner les mécanismes qui sous-tendent l’origine des espèces » (Lewin, Science vol. 210, pp. 883-887). J’ai acheté pour 30$ cette publication en ligne. Bien que les auteurs soient évolutionnistes et sont donc attachés au scénario des millions d’années et de l’ancêtre commun universel, certains d’entre eux reconnaissent certains points cruciaux de l’argumentaire créationniste:
« La question centrale de la conférence de Chicago était de savoir si les mécanismes à l’origine de la microévolution peuvent être extrapolés pour expliquer les phénomènes de la macroévolution. Au risque de trahir en partie les positions de certains participants, la réponse peut être donnée clairement : non. »
(emphase ajoutée)
« Dans un aveu remarquable, Francisco Ayala, une figure majeure de la promotion de la Synthèse moderne aux États-Unis, a déclaré : “Nous n’aurions pas prédit la stase à partir de la génétique des populations, mais je suis maintenant convaincu, à la lumière de l’équilibre ponctué, de ce que disent les paléontologues : les petites modifications ne s’accumulent pas.” »
(emphase ajoutée)
« Les espèces possèdent effectivement une capacité à subir des modifications mineures de leurs caractéristiques physiques et autres, mais celle-ci est limitée et, sur une plus longue durée, elle se manifeste par une oscillation autour d’une moyenne : pour un paléontologue observant le registre fossile, cela apparaît comme une stase. »
La capacité adaptative des animaux est un peu comme un couteau suisse. Ils sont génétiquement programmés pour pouvoir s’adapter à différentes situations. Un couteau suisse contient par exemple une à deux lames, un ciseau, un tournevis, une scie, un ouvre-boîte et d’autres outils. Cette conception intelligente permet d’effectuer divers petits travaux comme couper, tailler, scier, visser, dévisser, ouvrir, découper, limer, percer, saisir etc…
Malgré sa variété d’outils, un couteau suisse reste limité par sa taille, sa puissance et sa précision. Il ne permet pas de réaliser des travaux comme percer du béton, scier une grosse poutre ou abattre un arbre, souder des pièces métalliques, raboter et poncer une grande surface, serrer un gros boulon au couple prescrit, soulever une voiture, mesurer une tension électrique, usiner une pièce avec une grande précision etc… etc…
Les organismes sont semblables dans ce sens. Il peuvent s’adapter à certains climats et certains environnements mais leur génome a des limites, ils ne disposent pas des outils pour s’adapter indéfiniment à toutes les situations possibles.
Ensuite, Benoît, comme d’autres évolutionnistes, associent spéciation et macroévolution mais une petite nuance s’impose.
La spéciation est un processus par lequel une population ancestrale donne naissance à deux ou plusieurs espèces distinctes, généralement avec l’apparition d’un isolement reproductif. Elle peut se produire sans changement majeur du plan corporel. Deux espèces peuvent rester morphologiquement très semblables. Les créationnistes acceptent et intègrent la spéciation dans leur modèle.
La macroévolution c’est théoriquement, une évolution au-dessus de l’espèce et on est censé avoir des changements de plans corporels considérables par exemple le passage d’un reptile à un oiseau. C’est un champ beaucoup plus large qui inclut les extinctions, la diversification de groupes entiers, les tendances sur des millions d’années et l’apparition de grandes nouveautés comme les plumes ou les membres des tétrapodes.
Il faut aussi aborder les réseaux d’informations biologiques. L’activité des gènes dépend en grande partie des séquences d’ADN non codant. Pour modifier un trait chez un organisme, une mutation ne suffit généralement pas, il faut accomplir de vastes modifications coordonnées. Le fonctionnement génétique repose sur de nombreux réseaux de régulation et sur une forte interdépendance entre ADN, ARN, protéines et état de la cellule. Un gène agit rarement de manière isolée.
Ajouter ou modifier un élément biologique peut demander plusieurs ajustements pour qu’il s’intègre au fonctionnement de l’ensemble. Ajouter une pièce sous le capot de la voiture ne causera pas de miracle, il faut assurer sa position, ses connexions et ses interactions. Cela est hors de portée d’un système stochastique.
Ensuite le regroupement de deux espèces au sein d’un même genre ne dépend pas uniquement de leur capacité à se reproduire directement ensemble. Il faut parler du continuum reproductif. On va donner un exemple pour mieux comprendre.
Chez les félins, on observe un continuum reproductif:
Tous les félins (du tigre au chat domestique) peuvent être reliés par chaîne d’hybrides documentés.
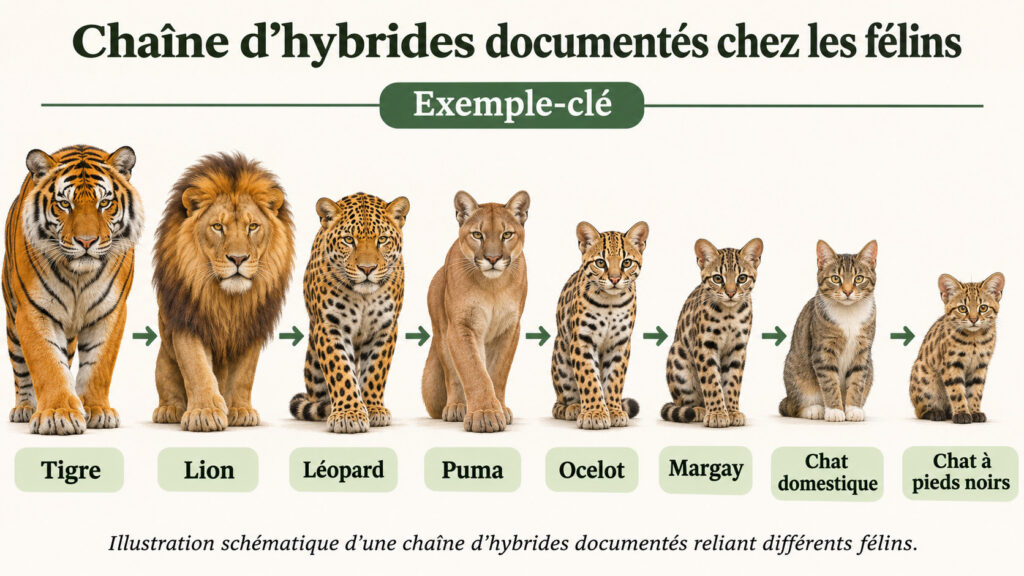
Exemple-clé : Tigre → Lion → Léopard → Puma → Ocelot → Margay → Chat domestique → Chat à pieds noirs.
Donc même si dogue allemand et chihuahua ne pouvaient pas se reproduire, même à l’aide d’une seringue, ça ne voudrait pas dire qu’ils n’appartiennent plus au même genre. Le tout est qu’on puisse reproduire une chaîne reproductive entre eux. C’est quelque chose qu’on ne peut pas faire, pour, par exemple, relier canins et félins.

On a bientôt fini. Benoît commente:
« ah les évolutionnistes ils sont cons quand même, ils disent qu’un poisson peut se transformer en vache, non mais quand même, faut vraiment être ridicule, ça n’arrive jamais tout ça…est-ce que vous êtes familier de la notion de stade phylotypique? Voici le stade phylotypique tel que présenté dans le livre « Biologie évolutive », le stade phylotypique c’est un stade du développement embryonnaire, quelque part entre la forme embryonnaire et le développement des membres de la tête, c’est un moment du développement de l’embryon où tous les embryons de vertébrés se ressemblent bougrement et ça veut dire que tous les embryons de vertébrés à un moment passe par le stade phylotypique, c’est généralement le moment où on a le bourgeon caudal qui se forme ici. » Ca veut dire qu’un à un moment, tous les vertébrés, vache incluse, ont une tête, des branchies, et oui nous avons en tout cas des arcs branchiaux, ils ont une tête, ils ont des arcs branchiaux, une longue colonne vertébrale qui se termine par une longue queue: le bourgeon caudal, et ils n’ont ni bras ni jambes. Ils ont une tête, une longue colonne vertébrale, une longue queue, pas de bras pas de jambe et des branchies… une vache et un poisson partagent un stade embryologique en commun, qui est essentiellement un plan d’organisation de poissons, ça par contre oui.«
Ici encore Benoît fait une confusion catégorielle. Il passe d’une observation embryologique réelle à une conclusion qui ne découle pas directement de cette observation.
Il faut distinguer deux choses :
- Le stade phylotypique est un concept de la biologie du développement.
- Affirmer qu’une vache passe par un stade embryonnaire qui serait « essentiellement un poisson » est une interprétation beaucoup plus discutable.
Il existe d’ailleurs des publications de biologistes évolutionnistes contestant l’idée que tous les embryons de vertébrés passent par un stade morphologique particulièrement uniforme.
Le stade phylotypique désignerait une période du développement embryonnaire durant laquelle des espèces apparentées présentent une organisation anatomique et des profils d’expression génétique particulièrement semblables.
Chez les vertébrés, on parle notamment du stade pharyngula, caractérisé par certaines structures communes:
- Un tube neural.
- Une notochorde.
- Des somites (segments embryonnaires).
- Des arcs pharyngiens.
- Un bourgeon caudal.
Même si ces ressemblances étaient réelles, elles ne signifieraient pas que les embryons sont identiques, ni qu’ils passent tous par un stade de poisson. Une étude évolutive déclare dans son abstract:19
« Nous présentons ici une analyse comparative quantitative du transcriptome de plusieurs embryons de vertébrés modèles et montrons que le stade pharyngulaire est le plus conservé, tandis que les stades antérieurs et postérieurs sont plutôt divergents.«
Benoît sélectionne le stade « le plus conservé », ne mentionnant pas les stades antérieurs et postérieurs du développement qui sont « divergents ».
En fait, il y a un débat dans les cercles évolutifs à ce sujet:
« Il n’existe pas de stade embryonnaire hautement conservé chez les vertébrés : implications pour les théories actuelles de l’évolution et du développement. »20
« Inverser le sablier : preuves quantitatives contre le stade phylotypique dans le développement des vertébrés. »21
Contrairement à ce que l’on pourrait croire, les similarités génétiques sont beaucoup plus cohérentes dans un cadre créationniste. Le plan développemental de base et les similarités génétiques étaient beaucoup plus attendues et logiques dans la perspective créationniste que dans la perspective évolutive.
Regardons un peu les prédictions des uns et des autres avant les études génétiques.
William Paley disait déjà en 1802:
« Chaque fois que nous trouvons un plan général poursuivi, mais avec des variations adaptées, dans chaque cas, aux exigences particulières du sujet… nous possédons, dans un tel plan et une telle adaptation… la preuve la plus forte d’intelligence et de dessein. (…) L’usine d’Arkwright a été inventée pour filer le coton. Nous voyons… une telle modification du principe de base, une telle variété du même plan… lorsqu’on l’observe dans ses différentes applications [pour filer la laine, le lin et le chanvre]. (…) Une grande partie de ce raisonnement est applicable à ce que l’on appelle l’anatomie comparée. Dans leur organisation générale, dans les grandes lignes du plan, dans la construction comme dans les fonctions de leurs principales parties… »
Paley, W. 1802. Natural Theology: Or, Evidences of the Existence and Attributes of the Deity, Collected from the Appearances of Nature, 2nd ed. London, England: R. Faulder, 227–258.
En 1975, l’illustre Henry Morris, en quelque sorte fondateur du renouveau du créationnisme moderne, déclarait:
« Le processus créateur aurait conçu des structures similaires pour des fonctions similaires et des structures différentes pour des fonctions différentes… Dans le modèle créationniste, ces mêmes similitudes sont prévues sur la base d’un même concepteur volontaire et intelligent. »
Morris, H. 1975. The Troubled Waters of Evolution. San Diego, CA: Creation-Life Publishers, 84–85.
Ernst Mayr, un évolutionniste de grande renommée mondiale déclarait quant à lui en 1963:
« Beaucoup de ce que l’on a appris sur la physiologie des gènes montre qu’il est manifestement futile de rechercher des gènes homologues [codes similaires attribués à une ascendance commune], sauf chez de très proches parents. S’il n’existe qu’une seule solution efficace pour répondre à une exigence fonctionnelle donnée, alors des complexes génétiques très différents aboutiront à la même solution, peu importe la voie empruntée pour y parvenir. Le dicton “Tous les chemins mènent à Rome” est aussi vrai pour l’évolution que pour les affaires quotidiennes. »
Mayr, E. 1963. Animal Species and Evolution. Cambridge, MA: Harvard University Press, 609.
L’histoire a donné raison à William Paley et Henry Morris. La génétique nous a révélé le plan développemental modulaire qui était prédit par les créationnistes.
Les gènes homéotiques (Hox) et autres régulateurs ne créent rien de nouveau, ils modulent des programmes déjà existants. Les expériences montrent surtout que quand on perturbe ces programmes, on obtient des malformations (comme des antennes transformées en pattes, des ailes surnuméraires, etc.) et non des innovations fonctionnelles. Cela prouve que la variabilité est canalisée dans des structures déjà prévues et pas que l’évolution peut inventer de nouveaux organes.
Les évolutionnistes pensent que c’est comme un logiciel qu’on copie-colle et modifie pour obtenir de nouvelles fonctions, ce serait la preuve que ça a évolué. Pour les créationnistes c’est un logiciel avec des modules réutilisables ce qui est la preuve qu’il a été programmé pour être polyvalent et modulable.
Les évolutionnistes disent que bras, jambes, doigts, antennes et ailes viennent d’un même programme développemental modulé. C’est ce qu’on attend d’un système conçu: des modules réutilisables, paramétrables, capables de produire des structures variées. Les expériences de génétique montrent qu’on peut modifier ces modules, mais elles n’inventent jamais du neuf: elles révèlent simplement la logique d’un plan commun. C’est de la modularité programmée et non une preuve d’évolution aveugle.
Il est désormais confirmé que des informations de régulation génétique similaires sont communes à de nombreuses classes d’organismes et contribuent à obtenir une anatomie fonctionnelle similaire, dont beaucoup présentent des conceptions remarquablement similaires.
Sean Carroll, biologiste évolutionnaire, avait déclaré:
« C’était inévitable. Des groupes de gènes Hox façonnaient le développement d’animaux aussi différents que les mouches et les souris, et nous savons maintenant que cela inclut pratiquement tous les animaux du règne, y compris les humains et les éléphants. Même le plus fervent défenseur de la recherche sur la mouche des fruits n’avait pas prévu la distribution universelle et l’importance des gènes Hox. Les implications étaient stupéfiantes. Des animaux disparates étaient construits non seulement avec les mêmes types d’outils, mais bel et bien avec exactement les mêmes gènes ! »
Carroll, S. 2005. Endless Forms Most Beautiful. New York: W. W. Norton & Company, 64.
L’embryon de vache possède certaines structures comparables à celles des embryons de poissons, parce qu’ils partagent une organisation générale de vertébrés.
Dans l’interprétation évolutionniste, ces ressemblances témoignent notamment d’une ascendance commune et de la conservation de mécanismes de développement.
Dans une interprétation créationniste, elles peuvent être comprises comme des ressemblances de plans d’organisation et de mécanismes biologiques.
Mais indépendamment de cette divergence d’interprétation, l’observation embryologique est la même : l’embryon de vache demeure un embryon de mammifère au cours de son développement, et ne possède pas de branchies fonctionnelles.
Benoit affirme tous les vertébrés, vache incluse, ont … des branchies … en tout cas des arcs branchiaux, le bon vocabulaire est plutôt qu’ils ont des arcs pharyngiens qui sont des structures embryonnaires homologues chez les vertébrés. Posséder des arcs pharyngiens n’est pas posséder des branchies fonctionnelles.
Chez le poisson les arcs pharyngiens contribuent notamment à la formation des mâchoires et de l’appareil branchial.
Chez la vache les arcs pharyngiens contribuent notamment à la formation des mâchoires, d’éléments de l’oreille, du cou et du pharynx.
Les structures branchiales respiratoires se développent chez les espèces à branchies mais pas chez les vaches ou chez les humains.
Bref il faut distinguer:
- l’ontogenèse qui décrit le développement d’un individu, depuis ses premiers stades jusqu’à l’organisme mature.
- la phylogenèse qui cherche à reconstituer les relations de parenté et l’histoire évolutive des lignées.
L’ontogenèse, en créationnisme, s’explique par le concepteur en commun qui a intégré un module commun à tous les êtres-vivants, ce module est activé ou exploité de différentes manières en fonction de l’espèce.
Benoît termine en disant:
« …dire que Mendel a démontré que les gènes ne sont pas créés, c’est une énorme connerie… donc la création de nouveaux gènes, on sait que ça existe, tout simplement parce que c’est la raison pour laquelle, nous primates voyons en couleur. Nos ancêtres primates non singe, non simiforme, comme les lémuriens par exemple, ce sont des primates qui ne sont pas des singes, les lémuriens ne voient pas en couleur, ils n’ont que deux types de récepteur dans leurs yeux, nous nous sommes trichromatiques, nous avons trois types de récepteurs dans nos yeux et le troisième récepteur c’est une duplication du gène d’un des deux premiers récepteurs qui existent chez les lémuriens, donc c’est un nouveau gène, c’est un gène qui a été dupliqué et puis qui a évolué et a connu sa propre histoire évolutive et qui a donné un nouveau gène donc c’est littéralement un nouveau gène. C’est comme ça qu’ils apparaissent les nouveaux gènes, ce sont des duplications d’anciens gènes qui ensuite vont connaître leur propre histoire évolutive, qui vont donner la naissance à des nouveaux gènes et quand on en arrive à citer Mendel pour débunker ça, je veux dire, faut vraiment être désespéré d’arguments, je suis désolé, c’est n’importe quoi., c’est juste n’importe quoi.«
À son époque, dans les années 1860, Mendel ne connaissait ni l’ADN ni les gènes au sens moderne. Il parlait de facteurs héréditaires pour expliquer ses résultats.
En croisant des pois présentant différents caractères, Mendel a constaté que des caractères pouvaient disparaître chez une génération, puis réapparaître à la suivante. Par exemple, des pois à graines jaunes croisés avec des pois à graines vertes pouvaient donner une première génération à graines jaunes, puis une génération comprenant à nouveau des graines vertes.
On explique aujourd’hui ce résultat par la transmission de versions d’un même gène, appelées allèles. Un allèle peut être présent sans que son effet soit visible dans le caractère observé.
Ses travaux ont mis en évidence la séparation et la transmission de ces facteurs héréditaires, ainsi que leur association en différentes combinaisons. Ce sont les bases de la génétique mendélienne.
Les croisements étudiés par Mendel redistribuaient principalement des variantes héréditaires déjà présentes chez les parents.
Ses expériences ont montré comment des caractères héréditaires déjà présents chez des plantes parentes se transmettent et se recombinent chez leurs descendants.
Un créationniste peut utiliser les pois de Mendel pour défendre l’idée que la diversification peut exploiter et modifier une richesse génétique préexistante et que l’origine des systèmes biologiques complexes exige une autre explication que les mutations. Maintenant la conclusion générale sur l’impossibilité de faire apparaître de nouveaux systèmes reste une interprétation plus large qui dépasse le cadre des expériences de Mendel.
Il est claire que les connaissances de l’époque étaient minces et que les expériences de Mendel ne peuvent pas être présentées comme si elles apportaient un constat définitif sur la possibilité qu’un gène puisse être créé ou non. Cela nous amène à parler des mécanismes proposés par les évolutionnistes aujourd’hui pour l’étayer.
Par contre Mendel et ses expériences sur les pois, c’est loin d’être un sujet dépassé ou ridicule comme le laisse penser Julien BenoÏt car les évolutionnistes continuent d’étudier, précisément Mendel et ses petits pois. Il y a une publication dans Nature qui est datée d’avril 2025 et qui s’intitule: Genomic and genetic insights into Mendel’s pea genes. En français ça donne basiquement quelque chose comme Perspectives génomiques et génétiques sur les gènes du pois de Mendel.
Donc l’affirmation de Coleman est sans doute exagérée mais la réponse de Julien BenoÏt l’est tout autant.
L’idée créationniste quand on parle de « spéciation mendelienne » c’est d’évoquer les genres créés à l’origine qui auraient porté une diversité génétique permettant l’apparition de nombreuses espèces apparentées, par recombinaison, isolement et fixation de variantes.
La duplication de gènes est une méthode supposée d’exaptation, c’est à dire qu’il s’agit de la reprise d’une fonction existante pour servir un autre objectif. Avec le Transfert Horizontal de Gènes (THG), c’est un mécanisme très utilisé par les évolutionnistes pour essayer d’expliquer comment de nouveaux gènes sont créés. Nous allons voir que la situation est beaucoup moins favorable quand on analyse les choses de près.
Notons premièrement que le scénario de la duplication de gènes pour expliquer la vision trichromatique humaine reste un … scénario. Personne n’a observé ça.
Il s’avère que l’oeil est le 2ème organe le plus complexe chez l’humain, en fait on dit même que l’oeil fait partie du cerveau humain. Sa complexité et ses différents systèmes intriqués sont irréductibles, c’est un ensemble de systèmes « tout ou rien », soit tout est présent et ça fonctionne, soit il manque quelque chose et rien ne fonctionne.
Plusieurs systèmes interdépendants sont nécéssaires pour faire fonctionner la vision. Quelques uns d’entre eux sont le système optique qui focalise la lumière sur la rétine, le système de régulation lumineuse qui ajuste la quantité de lumière entrant dans l’oeil, le système photorécepteur qui détecte la lumière et permet la vision des couleurs et en faible luminosité, le système de phototransduction qui transforme l’énergie lumineuse en signaux électriques, le système de traitement nerveux qui traite les contrastes, les couleurs et d’autres informations visuelles, le système de transmission qui transmet les informations visuelles au cerveau, le système de mise au point qui ajuste la focalisation pour voir à différentes distances, le système musculaire qui oriente les yeux et coordonne leurs mouvements, le système de protection et de lubrification qui protège, nettoie et humidifie la surface oculaire et le système de maintien et de nutrition qui maintient la forme, la pression et l’alimentation des tissus oculaires.
On peut aussi ajouter un onzième système, extérieur à l’œil mais indispensable à la perception visuelle consciente qui est le système cérébral de traitement de la vision. Il comprend notamment le cortex visuel, qui participe à l’analyse des formes, couleurs, mouvements, profondeurs et objets.
L’œil ne se contente pas de recevoir la lumière, il la focalise, la convertit en signaux nerveux, effectue un premier traitement de ces signaux et les transmet au cerveau.
Pour la discussion sur l’évolution de l’œil, il faut distinguer l’origine des pigments visuels (opsines) de l’origine et de l’intégration de tous ces autres systèmes.
La duplication d’un gène d’opsine peut éventuellement expliquer une diversification des sensibilités spectrales mais ça n’explique pas l’origine de l’ensemble de l’appareil visuel, qui constitue une question évolutive beaucoup plus vaste.
Il n’y a pas de récits évolutifs concrets sur l’évolution de l’oeil car on trouve des yeux sophistiqués dès les premières couches fossilifères. Quelques citations de publications évolutionnistes sont assez éloquentes sur le sujet:2223
« Nous décrivons ici des yeux fossiles exceptionnellement bien conservés, provenant des schistes d’Emu Bay, en Australie-Méridionale, datant du Cambrien inférieur (environ 515 millions d’années). Ces fossiles révèlent que certains des premiers arthropodes possédaient des yeux composés très perfectionnés, comportant chacun plus de 3 000 grandes lentilles ommatidiales et une “zone lumineuse” spécialisée […] Ces yeux sont plus complexes que ceux connus chez les trilobites contemporains et sont aussi perfectionnés que ceux de nombreuses formes vivantes actuelles. » (emphase ajoutée)
« Dans un œil de trilobite phosphatisé provenant du Cambrien inférieur de la région baltique, nous avons découvert des vestiges minéralisés de structures cellulaires caractéristiques d’un œil moderne composé à apposition focale, semblable à ceux d’une abeille ou d’une libellule. Cela montre que des yeux sophistiqués existaient déjà dès le début du registre fossile des organismes supérieurs… »
Il n’y a pas d’ancêtres identifiés ou de chaînes évolutives pour expliquer l’évolution de ces yeux, il n’y a pas d’ancêtres tout court pour expliquer les organismes du Cambrien. Cela correspond davantage à un scénario de création séparée et aboutie plutôt qu’à de longs scénarios évolutifs.
Il n’y a pas de débat sur le fait que la duplication de gènes se produit. Cela peut se faire sur des gènes, parties de gènes, des chromosomes ou des parties de chromosomes. Nous savons cela parce que la duplication de gènes est une cause importante de maladies et de cancers (certains cas rares de trisomie 21 par exemple).24 Voici un exemple:
« Une duplication spontanée du génome des mammifères se produit dans environ 1 % des fécondations. Bien que l’on considère qu’une ou plusieurs duplications du génome entier ont influencé l’évolution des vertébrés, la polyploïdie chez les mammifères actuels est généralement incompatible avec le développement et le fonctionnement normaux de la quasi-totalité des tissus, à quelques exceptions près. Le plus souvent, un écart du niveau de ploïdie par rapport à la norme diploïde (2n) entraîne un état pathologique. »
Les processus mis en avant par les évolutionnistes sont souvent des processus qui sont essentiellement délétères et ils essaient d’en faire des processus créateurs d’ordre.
Continuons sur un autre point très important.
L’évolution par duplication de gènes fait le pari qu’une augmentation de la taille du génome correspond à la complexité de l’organisme mais les preuves n’indiquent pas cela. Ce n’est pas la taille du génome qui détermine la complexité mais les séquences régulatrices intergéniques et les hiérarchies de régulation des gènes.
Les humains ont environ 25 000 gènes, le riz en a 50 000. Le plus grand génome n’est pas celui de l’homme, mais celui de la bactérie « Epulopiscium fishelsoni » qui contient 25 fois plus d’ADN qu’une cellule humaine. L’un de ses gènes a été dupliqué 85 000 fois, mais il s’agit toujours d’une bactérie. La même dynamique s’observe au niveau des nombres de chromosomes.
C’est la fonctionnalité particulière des organismes qui rend nécessaire tel ou tel nombre de chromosomes. Il n’y a pas nécessairement une relation où plus de complexité = plus de chromosomes ou de gènes.
La mouche des fruits a par exemple 8 chromosomes quand une espèce d’écrevisse en a 200. Les chiens en ont 78 quand les humains en ont 46. Cela ne correspond pas aux attentes du modèle évolutif.
La théorie de duplication de gènes pour produire l’évolution est donc erronée car elle prédit une corrélation entre la complexité de l’organisme et le nombre de gènes, la taille du génome et/ou le nombre de chromosomes. Mais le nombre de gènes ou de chromosomes ne produit pas l’augmentation de complexité attendue.
La taille du génome ne détermine pas la complexité. En fait la construction d’un organisme se produit d’une manière plus complexe et efficace que cela. Cela est assez compliqué à expliquer mais avec l’analogie du piano et de la partition musicale nous pouvons tenter de faire comprendre au grand public comment un organisme est fabriqué.
Visualisons un piano avec toutes ses touches de clavier. La musique qui est jouée par le pianiste n’est pas déterminée par les touches du clavier mais par le pianiste qui suit les notes d’une partition musicale et frappe les touches dans une certaine séquence. La particularité d’un être-vivant est similaire. Ce ne sont pas les gènes qui sont principalement responsables de sa formation, c’est le système de contrôle épigénétique qui décide comment les utiliser.

Il y a un nombre croissant de voix scientifiques (souvent évolutionnistes eux-mêmes) qui reconnaissent les limites, contradictions et insuffisances de la théorie actuelle (modèle néo-darwinien), tout en appelant à un renouvellement profond du paradigme.
L’ADN non codant est en fait aussi important que l’ADN codant, lequel ne peut pas fonctionner tout seul. Posséder les instructions de fabrication des protéines ne suffit pas, il faut aussi pouvoir les lire et coordonner leur utilisation. Une cellule du foie et un neurone possèdent presque le même ADN, mais leur fonctionnement dépend largement des gènes qu’ils activent et de la manière dont ils les régulent.
Il y a des contradictions entre arbres morphologiques et moléculaires. Une étude de l’Université de Bath (2022) intitulée « Most of our evolutionary trees could be wrong » montre que les arbres phylogénétiques basés sur l’anatomie (forme, structure) contredisent souvent ceux construits avec les données moléculaires (ADN).25
- Exemple avec les Afrotheria (éléphants, taupes dorées, lamantins, damans…) qui sont très différents morphologiquement, mais semblables génétiquement.
Cela remet en question le postulat que la ressemblance morphologique = parenté évolutive. Les arbres moléculaires reflètent souvent des proximités géographiques, non des ressemblances anatomiques. Des espèces très différentes mais vivant en Afrique sont groupées ensemble par l’ADN. Cela affaiblit l’idée que la sélection naturelle à partir de mutations aléatoires est suffisante pour expliquer les lignées de vie.
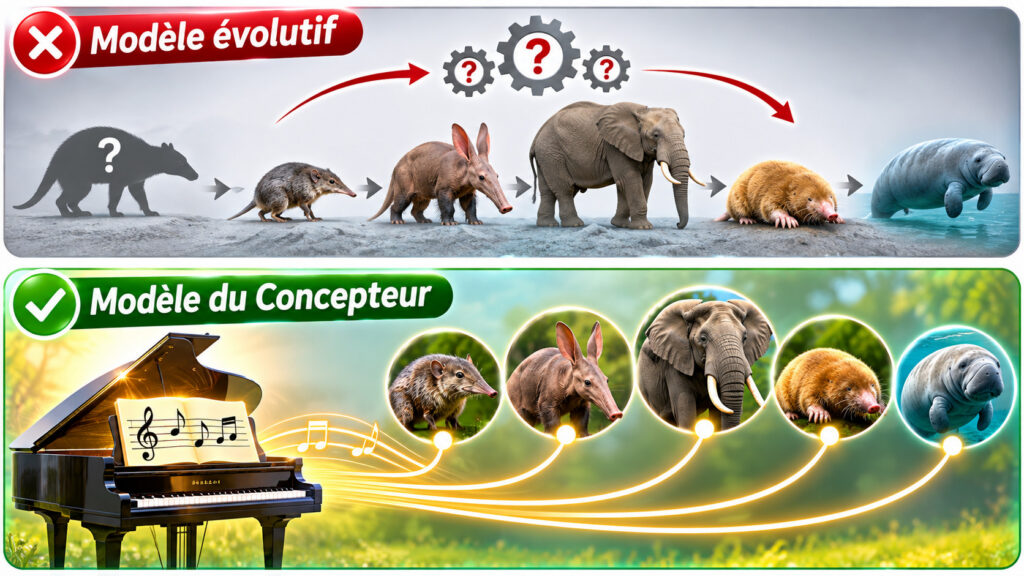
Dans The Guardian (2022) on lit:
« Le récit classique de l’évolution dans les manuels est absurde, simpliste et trompeur. »
Dans Brown & Hullender (2022) on lit:
« Les mutations aléatoires + sélection naturelle ne peuvent pas produire des nouvelles structures complexes.
La probabilité de l’évolution darwinienne est si faible qu’elle tombe dans le domaine de l’impossible statistique (ordre de grandeur 10⁻⁵⁰). »
Avec Fodor & Piattelli-Palmarini (2010, 2011) on lit:
« Darwin avait tort… Personne ne sait comment les phénotypes évoluent. »
Ces auteurs sont des évolutionnistes athées, donc pas suspects de biais religieux, mais pourtant très critiques.
Il y a des problèmes méthodologiques du darwinisme dénoncés comme l’homologie circulaire où on on postule que la similarité implique un ancêtre commun, puis on cite la similarité comme preuve. Il y a aussi le manque de mécanismes observables pour expliquer l’apparition d’organes complexes (problème de la complexité irréductible). Enfin la sélection naturelle semble « inactive » dans de nombreux cas de changements génétiques (Buranyi: « natural selection was asleep at the wheel »).
Les petits changements (microévolution) observables n’impliquent pas qu’on puisse expliquer les grands changements (nouveaux types corporels, organes, métabolismes). L’analogie entre les deux est abusive: on ne peut pas extrapoler indéfiniment.
De manière cocasse les mécanismes néodarwiniens n’expliquent même pas les changements appelés « microévolution ». Ces adaptations ne sont pas dues à la sélection naturelle et aux mutations aléatoires.
Exploration d’une Nouvelle Théorie de Biologie Intelligente: Continuous Environmental Tracking (CET)
James Shapiro dit que l’ADN change activement via des mécanismes intégrés (natural genetic engineering) et non par erreurs aléatoires.
Mae-Wan Ho dit que la Synthèse Moderne doit être « entièrement remplacée » ; ses défenseurs sont « ignorants en génétique moléculaire »:26
« Je pense que la Synthèse moderne doit être entièrement remplacée et, malheureusement, ceux qui sont très attachés au néodarwinisme refusent d’examiner les preuves. Beaucoup d’entre eux ne connaissent absolument rien à la génétique moléculaire. Ou alors, comme [Richard] Dawkins, ils se contentent de dire : “Je n’y crois tout simplement pas.” Ce ne sont pas des scientifiques. »
(emphase ajoutée)
Suzan Mazur, Stephen Meyer, Bob Holmes (New Scientist), tous admettent que l’apparition de nouvelles espèces reste mystérieuse.
Bien que les humains et les chimpanzés partagent de nombreux gènes similaires, leur expression génétique diffère souvent de manière profonde, en particulier dans le cerveau. Des études ont montré que ce ne sont pas tant les séquences des gènes elles-mêmes qui expliquent les différences majeures entre les deux espèces, mais plutôt la manière dont ces gènes sont activés, désactivés, et régulés au cours du développement et dans les différents tissus.
Par exemple, certains gènes sont exprimés à des niveaux beaucoup plus élevés dans le cerveau humain que chez le chimpanzé, ou sont activés à des moments différents de la croissance. Ces variations dans la régulation, souvent situées dans des régions non codantes de l’ADN (comme les promoteurs ou les enhancers), produisent des effets significatifs sur la morphologie, le comportement et les capacités cognitives. Cela remet en question l’argument selon lequel une forte similarité génétique impliquerait nécessairement une origine commune, et soutient au contraire, dans une perspective créationniste, l’idée d’un design dirigé, utilisant des briques biologiques communes mais orchestrées de manière unique chez l’homme.
Dans le modèle créationniste, la présence de modules génétiques similaires dans des organismes très différents est interprétée non comme le résultat de l’évolution aléatoire et graduelle, mais comme le fruit d’un design intentionnel et modulaire, où Dieu aurait équipé chaque « kind » de capacités d’adaptation contextuelles. Le critère régional (comme l’Afrique pour les Afrotheria) peut alors refléter une activation contextuelle de modules génétiques communs, sans impliquer de parenté évolutive.
Encore un point intéressant.
La duplication de gènes n’est pas suffisamment élevée pour produire l’évolution désirée. Une étude empirique de Lynch et Conery a utilisé des techniques démographiques en régime permanent pour déterminer avec précision le nombre de gènes dupliqués. Cette étude a évalué sept génomes complètement séquencés.
D’après leurs recherches, ils ont estimé que « le taux moyen de duplication d’un gène eucaryote est de l’ordre de 0,01/gène/million d’années, ce qui est du même ordre de grandeur que le taux de mutation par site nucléotidique« . Les chercheurs ont conclu de leur étude que « l’origine d’une nouvelle fonction semble être un destin très rare pour un gène dupliqué«.27
Behe et Snoke dans une autre étude28 ont conclu que, même avec des estimations libérales, la fixation de caractéristiques nécessitant des changements dans plusieurs résidus nécessite à la fois des tailles de population et des nombres de générations si grands qu’ils « semblent prohibitifs ». Ils ont conclu que la duplication de gènes, associée à des mutations ponctuelles, ne semble pas être un mécanisme prometteur pour produire de nouvelles protéines nécessitant plus d’une seule mutation ponctuelle.
La duplication de gènes ne fournit pas aux évolutionnistes une source significative de nouveaux gènes. Il n’y a en réalité pas de preuves indiquant que la duplication de gènes est la source de gènes spécifiques.
Un problème sévère qui s’est amplifié depuis les années 2000 est la découverte toujours grandissante des gènes orphelins, des gènes qui sont « taxonomiquement restreints ». L’idée évolutive de base était que les gènes dérivaient de gènes plus anciens, on pouvait en quelque sorte retracer une histoire des gènes.
Il est vrai qu’il y a des sets de gènes similaires communs à tout le monde du vivant (hox genes), cela peut s’expliquer par un concepteur en commun, réutilisant les mêmes blocs utiles pour des fonctions/besoins similaires. Mais il y a aussi des gènes distincts, qui permettent de fabriquer des caractéristiques particulières.
Les gènes orphelins sont des gènes sans histoire évolutive, ils ne peuvent pas s’expliquer facilement par duplication, ils sont compatibles avec un modèle de biologie intelligente et des créations séparées à l’origine.
Parlons du transfert horizontal de gènes. Même s’il n’a pas été évoqué par Benoit, il fait en général parti des « cartes » jouées par les évolutionnistes pour essayer de défendre l’évolution.
Le transfert horizontal de gènes (THG) est le processus par lequel un gène est transféré d’un organisme à un autre sans transmission héréditaire verticale (de parent à descendant). Si ce phénomène est largement observé chez les bactéries (qui échangent facilement des gènes pour par exemple développer une résistance aux antibiotiques), il est beaucoup plus controversé chez les organismes multicellulaires et complexes, comme les animaux ou les plantes.
Les évolutionnistes utilisent le THG de manière abusive pour expliquer l’apparition des gènes orphelins chez des organismes non apparentés, sans présenter de mécanismes clairs de transfert. C’est une manière d’argumenter la macro évolution que ne peuvent expliquer les autres mécanismes standard de l’évolution.
Nous apercevons cette tentative dans cette publication par exemple:29
Le THG a contribué à l’évolution de nombreux animaux, voire de tous, et le processus est en cours dans la plupart des lignées.
Ce discours est bien évidemment différent de ceux dont nous avions été assurés pendant des décennies sur les mutations:30
…Les mutations sont essentielles à l’évolution. Chaque caractéristique génétique dans chaque organisme fut initialement le résultat d’une mutation.
Il est également différent de celui de Benoît qui disait:
C’est comme ça qu’ils apparaissent les nouveaux gènes, ce sont des duplications d’anciens gènes qui ensuite vont connaître leur propre histoire évolutive, qui vont donner la naissance à des nouveaux gènes.
Nous voyons que la déclaration de Benoît ne peut pas être vraie quand on considère les gènes orphelins ou taxonomiquement restreints. Ceux-ci n’ont pas d’homologues donc ils n’ont pas pu être copiés et cooptés. C’est pourquoi certains évolutionnistes avancés ajoutent dans le mix le transfert horizontal de gènes.
En réalité beaucoup de ces gènes sont impliqués dans des fonctions métaboliques essentielles ce qui est incompatible avec l’idée qu’ils soient des gènes « étrangers » provenant du THG. En effet, ces gènes codent pour des protéines enzymatiques cruciales et sont intégrés dans des réseaux biochimiques essentiels. Cela indique qu’ils sont conçus pour fonctionner de manière intégrée et ne sont pas des éléments ajoutés de manière aléatoire ou opportuniste. C’est pourquoi il est peu probable que des gènes essentiels aient pu être importés via le THG sans perturber la biologie de l’organisme hôte.
La plupart des cas de THG connus impliquent des relations hôte-parasite spécifiques qui facilitent le transfert de gènes, une situation absente dans de nombreux cas où l’on retrouve ces gènes orphelins.
Les gènes clés, notamment ceux impliqués dans le métabolisme, doivent être bien intégrés dans les processus cellulaires complexes pour fonctionner correctement. Un transfert aléatoire pourrait difficilement réussir une telle intégration sans perturber l’équilibre biochimique de l’organisme receveur.
Les gènes des mammifères sont particulièrement complexes. En moyenne, seuls 10 % de la séquence génétique d’un gène animal codent pour des protéines ; le reste est constitué de régions régulatrices sophistiquées qui influencent comment et quand le gène est exprimé, ainsi que la façon dont il interagit dans le réseau cellulaire.
Chez les eucaryotes complexes comme les mammifères, les barrières biologiques entre espèces rendent le THG moins courant et souvent non fonctionnel. Les bactéries doivent cibler des cellules spécifiques (comme les cellules germinales) pour que le transfert soit héréditaire, ce qui est rare et souvent spécifique aux organismes plus simples ou aux cellules immunitaires qui peuvent capter de l’ADN environnemental sans l’intégrer dans le génome de manière stable.
Un des problèmes majeurs avec le scénario évolutif concerne donc les gènes orphelins. Ces derniers ne sont pas reliés à « l’arbre de la vie ».
Dans une étude de 2009 sur le sujet, Khalturin et al. ont noté que:31
« les analyses comparatives du génome indiquent que chaque groupe taxonomique étudié jusqu’à présent contient 10 à 20 % de gènes qui n’ont pas d’homologues reconnaissables chez d’autres espèces ».
Dans une autre étude, Tautz et Domazet-Lošo affirment que:32
« chaque lignée évolutive abrite des gènes orphelins qui n’ont pas d’homologues dans d’autres lignées et dont l’origine évolutive n’est que mal comprise ».
Le généticien créationniste, Jeffrey Tomkins déclare:33
Les TRG [gènes taxonomiquement restreints] apparaissent soudainement dans des génomes sans précurseurs évolutifs et leur présence est un mystère expliqué uniquement par des scénarios imaginatifs sans preuve concrète de l’existence d’un tel mécanisme. Les deux principales propositions hypothétiques pour les TRG sont la « synthèse de novo » et le « transfert horizontal de gènes » (également appelé transfert latéral de gènes).
Étant donné que les évolutionnistes tentent d’invoquer la duplication des gènes comme méthode d’origine de la plupart des gènes du génome, les TRG ne correspondent pas à ce modèle car ils n’ont aucune autre séquence dans le génome à partir de laquelle ils auraient pu être copiés – ils n’ont également, par définition, aucun paralogue (séquences similaires dans le même génome).
Le concept de manipulation ou de mélange aléatoire de l’ADN pour produire un gène fonctionnel complexe est un processus purement mythique, sans preuve. En fait, il défie les lois les plus élémentaires de la probabilité et de l’information, récemment décrites en détail par Meyer.34
Une autre idée évoquée est celle du transfert horizontal de gènes [THG], dans lequel les TRG [gènes orphelins] d’un taxon proviennent d’un transfert d’un autre taxon par des moyens non sexuels. Étant donné que, par définition, les TRG n’ont pas d’homologues dans d’autres taxons, l’organisme donneur serait inconnu. Chez les bactéries, le transfert horizontal de gènes se produit bien que sa fréquence n’ait pas encore été déterminée avec précision par une variété de mécanismes propres aux procaryotes. Alors que le transfert de gènes d’un microbe à un hôte a été documenté chez les eucaryotes, le transfert de gènes entre métazoaires35 manque d’un mécanisme prouvé viable.
Le THG est bien connu parmi les bactéries, où il est rendu possible grâce à des structures appelées pili. Ces pili sont des tubes protéiques qui permettent à une bactérie de se connecter à une autre et d’échanger de petits fragments d’ADN, un peu comme le partage de logiciels entre ordinateurs. Cette capacité d’échange génétique rapide est un avantage pour l’adaptation, comme dans le cas de la transmission de gènes de résistance aux antibiotiques.
Cependant, le THG entre une bactérie et un hôte multicellulaire est beaucoup plus rare et complexe. Il requiert un mécanisme permettant l’introduction et l’intégration stable d’un gène étranger dans le génome d’un organisme multicellulaire sans perturber son fonctionnement. Les cas observés sont souvent limités à des interactions symbiotiques ou parasitaires, dans lesquelles une bactérie passe du matériel génétique à un hôte spécifique avec lequel elle entretient une relation étroite.
Jeffrey Tomkins déclare:
Une étude distincte de 2012 a montré que les gènes natifs hautement exprimés ne pouvaient pas être partagés via THG, même entre bactéries, car ils perturberaient gravement la biochimie cellulaire essentielle. Et ce sont exactement les types de gènes qui ont été étudiés chez le rotifère.
…Il n’est pas connu non plus que le THG se produit en masse, et le THG des gènes essentiels est en théorie impossible.
La publication citée par Tomkins est « high Expression Hampers Horizontal Gene Transfer (traduction: une expression élevée entrave le transfert horizontal de gènes) ».36 Cet article explore un obstacle majeur au transfert horizontal de gènes (THG) : l’expression élevée des gènes. Les chercheurs ont étudié le phénomène dans le contexte des bactéries et des gènes qu’elles pourraient potentiellement partager avec d’autres organismes.
Les gènes qui sont fortement exprimés dans une cellule (c’est-à-dire que leur ARN et leurs protéines sont produits en grandes quantités) créent des contraintes lorsqu’ils sont transférés à un nouvel hôte. Ces gènes peuvent causer des déséquilibres biochimiques dans l’hôte récepteur, car leurs produits s’ajoutent aux réseaux métaboliques complexes déjà en place ce qui peut nuire au fonctionnement cellulaire.
Ces gènes taxonomiquement restreints sont très intriguants pour les évolutionnistes, ils ne sont pas à expliciter dans leur modèle, cela se perçoit dans leurs propres publications:
« De manière frappante, une proportion étonnamment grande de familles de gènes n’est tout simplement pas partagée entre la plupart des lignées cellulaires… la prévalence de familles de gènes non partagées est encore plus marquée à des échelles évolutives plus larges, c’est-à-dire pour des lignées comme les grands groupes microbiens…
comment et pourquoi la vie réinvente-t-elle massivement ses gènes ?…
Pour comprendre pleinement l’histoire des lignées, il devient encore plus prioritaire d’expliquer l’origine de gènes qui n’ont pas d’homologues en dehors d’une lignée donnée.
Cette absence apparente d’homologues encourage le développement de modèles d’origine des gènes plus complexes que la simple divergence à partir d’un unique dernier ancêtre commun. »
“Retracing lineage history: time to emphasize genetic turnover,” Trends in Microbiology 29 (November 2021): P957–958 – Andrew Watson de Newcastle University, Eric Bapteste du CNRS de Paris et Philippe Lopez de la Sorbonne
W. Ford Doolittle qualifie LUCA, l’organisme hypothétique à la racine de l’arbre de la vie (UCD), « d’entité profondément problématique ». Il affirme qu’il pourrait ne jamais avoir existé « une cellule ancestrale unique dont le génome aurait contenu un ancêtre direct (que ce soit le dernier ancêtre commun ou ses prédécesseurs directs) de tous les gènes présents aujourd’hui dans tous les génomes. »
(2009 ; emphase ajoutée)
Dans un article majeur publié l’année suivante (2010), Doolittle s’est montré encore plus explicite. L’insistance sur le verbe « was » apparaît dans le texte original:
« Darwin avait sans doute tort. Pour la majeure partie de la vie et de son histoire, la descendance avec modification n’est pas le simple processus de ramification qu’il imaginait. »
W. Ford Doolittle: Biologiste Moléculaire de l’Université Dalhousie et Académie nationale des sciences des États-Unis (membre étranger)
En 2007, Craig Venter, pionnier de la génomique, a exprimé publiquement son scepticisme concernant l’existence d’un ancêtre commun unique à l’ensemble du vivant. À la lumière de l’extraordinaire diversité génétique découverte chez les microorganismes, il envisageait l’existence de milliers d’ancêtres.
Cette réflexion montre que la représentation classique d’un arbre du vivant remontant à une cellule ancestrale unique peut être discutée au sein même de la biologie évolutionniste.
« Nous ne sommes qu’à la pointe de l’iceberg de ce que représente la divergence sur cette planète… Une question est la suivante : peut-on extrapoler à partir de ces données pour décrire l’ancêtre commun le plus récent ?
Je ne suis pas forcément convaincu qu’il existe un ancêtre unique. Cela me paraît contre-intuitif. Je pense que nous pourrions avoir des milliers d’ancêtres communs récents, et ils ne sont pas nécessairement si “communs”. »
Craig Venter est un biologiste et généticien très influent dans le domaine de la génomique. Il a été l’un des principaux acteurs du séquençage du génome humain dans les années 1990-2000. https://www.edge.org/conversation/j_craig_venter-craig-venter%E2%80%94life-what-a-concept (emphase ajoutée)
Cela met à mal, à tout le moins, l’idée que « toute la vie actuelle descend d’une cellule individuelle unique » et le fait que cela soit admis par un biologiste et un généticien évolutionniste de premier ordre est extrêmement significatif.
Preuve de conception et origine surnaturel
Nous sommes intuitivement capable de différencier un résultat aléatoire d’un résultat organisé. Si nous marchons en forêt et trouvons un bonhomme de neige, nous sommes bien conscients que celui-ci n’a pas pu se former tout seul par les forces du vent et l’assemblage aléatoire de matériaux environnants. Si on trouve une cabane dans cette même forêt nous savons qu’elle n’a pas pu se construire toute seule. Les marques d’intelligence et d’organisation sont claires pour tout le monde.
De la même manière quand on voit les systèmes vivants, leur complexité, leur agencement et même leur beauté, il est normal d’en venir à la conclusion qu’ils ont été créés. Les systèmes vivants sont d’ailleurs plus ingénieux que les systèmes créés par l’homme, qui d’ailleurs imitent les systèmes vivants.
Les lois naturels empêchent non seulement la création de la vie (voir travaux de Louis Pasteur) mais aussi la création de matière (première loi de thermodynamique). Cela nécessite obligatoirement un miracle à la création, sans lequel rien existerait.
La terre certes n’est plus ce qu’elle était autrefois lorsqu’elle a été créée. La chute de l’homme dans le Jardin d’Eden explique l’introduction d’activités hostiles comme le carnivorisme ou le parasitisme. La création est un peu comme un beau vase chinois brisé qui a été réparé. Il n’a plus la même splendeur qu’autrefois mais on perçoit encore sa beauté. Les bris n’annulent pas l’impression de design.

Le temps est l’ennemi de l’évolution, il faut que tout soit en place sinon rien de marche (voir exemple d’interdépendance à tous les niveaux), l’entropie génétique (la flèche du temps va vers le bas et la dégradation, tandis que l’évolution a besoin d’un scénario où la flèche va vers le haut et l’amélioration).
L’ancien athée Anthony Flew, après avoir étudié l’ADN avait déclaré:
A mon avis, ce que l’ADN a prouvé, c’est qu’une intelligence a dû être impliquée dans l’assemblage extraordinaire de ces éléments si divers.
There is a God: How The World’s Most Notorious Atheist Changed His Mind by Antony Flew with Roy Varghese Harper Collins, New York, 2007.
Voilà en somme pour ma « review » de la critique de Julien Benoît. Que chacun soit juge et que Dieu vous bénisse et vous attire à lui si ce n’est pas encore fait.
Les images de l’article ont été générées à l’aide de l’IA.
- Heinze, J. et al. (2017). « Ant queens increase their reproductive efforts after pathogen infection ».
- Brannelly, L. A. et al. (2016). « Amphibians with infectious disease increase their reproductive effort: evidence for the terminal investment hypothesis », Open Biology, 6, 150251.
- « Idiosyncratic effects of bacterial infection on female fecundity in Drosophila melanogaster », Current Research in Insect Science, 6, 100098.
- https://education.nationalgeographic.org/resource/unicellular-vs-multicellular/.
- https://febs.onlinelibrary.wiley.com/doi/full/10.1111/febs.70109..
- Archibald, J., Endosymbiosis and eukaryotic cell evolution, Current Biology 25(19):R911–R921, 5 October 2015; R911.
- Smits, P., et al., Reconstructing the evolution of the mitochondrial ribosomal proteome, Nucleic Acids Research 35(14):4686–4703, July 2007.
- Bergman, J., Research has overturned endosymbiosis: the unbridgeable chasm between prokaryotes and eukaryotes remains, J. Creation 35(1):38–47, 2021.
- Margulis, L. and Schwartz, K., Five Kingdoms: An illustrated guide to the phyla of life on earth, W. H. Freeman and Co., New York, p. 217, 1998.
- Origin: Probability of a Single Protein Forming by Chance.
- Glass et al. (2006). Proceedings of the National Academy of Sciences (PNAS), 103(2), 425–430, 2006.
- Hutchison et al. (2016). Science, 351(6280), aad6253, 25 mars 2016.
- Paprotka, T. et al. 2011. Recombinant Origin of the Retrovirus XMRV. Science. 333 (6038): 97-101.
- Paprotka, T. et al. 2011. Recombinant Origin of the Retrovirus XMRV. Science. 333 (6038): 97-101.
- Barbulescu et al., A HERV-K provirus in chimpanzees, bonobos and gorillas, but not humans, Current Biology, 11(10), 779–783, 2001.
- Distribution of targets for avian retrovirus DNA integration in vivo – E S Withers-Ward, Y Kitamura, J P Barnes, and J M Coffin.
- Holmes E. C. 2003. Molecular Clocks and the Puzzle of RNA Virus Origins. Journal of Virology. 77 (7): 3893–3897.
- Borger, P. 2009. The design of life: part 3—an introduction to variation-inducing genetic elements.Journal of Creation. 23 (1): 99-106.
- https://www.nature.com/articles/ncomms1248.
- https://pubmed.ncbi.nlm.nih.gov/9278154/.
- https://pubmed.ncbi.nlm.nih.gov/12639312/.
- Paterson et al. (2011) — Nature « Modern optics in exceptionally preserved eyes of Early Cambrian arthropods from Australia ».
- Schoenemann et al. (2017) — PNAS « Structure and function of a compound eye, more than half a billion years old ».
- Eakin, G.S. and Behringer, R.R., Tetraploid development in the mouse, Developmental Dynamics 228:751–766, 2003.
- https://www.bath.ac.uk/announcements/study-suggests-that-most-of-our-evolutionary-trees-could-be-wrong/.
- https://www.huffpost.com/entry/maewan-ho-no-boundary-bet_b_6944450.
- Lynch, M. and Conery, J.S., The evolutionary demography of duplicate genes, J. Structural and Functional Genomics 3:35–44, 2003.
- Behe, M.J. and Snoke, D.W., Simulating evolution by gene duplication of protein features that require multiple amino acid residues, Protein Science 13:2651–2664, 2004; p. 2652.
- Crisp, A. et al. 2015. Expression of multiple horizontally acquired genes is a hallmark of both vertebrate and invertebrate genomes. Genome Biology. 16: 50.
- Carlin, J.L. Mutations Are the Raw Materials of Evolution. Nature Education Knowledge 3 (10) : 10, 2011.
- Khalturin, K., Hemmrich, G., Fraune, S., Augustin, R. and Bosch, T.C., More than just orphans: are taxonomically-restricted genes important in evolution?, Trends in Genetics 25(9):404-13, 2009 | DOI: 10.1016/j.tig.2009.07.006.
- Tautz, D. and Domazet-Loso, T., The evolutionary origin of orphan genes, Nature Reviews Genetics 12:692–702, 2011 | DOI: 10.1038/nrg3053.
- https://creation.com/rogue-data-fell-tree-of-life.
- Pour l’étude de Meyer: Meyer, S.C., Signature in the cell: DNA and the Evidence for Intelligent Design, 1st edn, HarperOne, 2009.
- Les métazoaires comprennent la grande majorité des animaux que nous connaissons, tels que les mammifères, les oiseaux, les reptiles, les poissons, les insectes, les crustacés, les étoiles de mer, les mollusques, etc.
- Park, C. and J. Zhang. 2012. High Expression Hampers Horizontal Gene Transfer. Genome Biology and Evolution. 4 (4): 523-532.
Inscrivez-vous sur QQLV!
Pour soutenir l’effort du ministère et la création de contenus:
RECEVEZ DU CONTENU par email
Recevez du contenu biblique, archéologique et scientifique dans votre boîte mail!